
マイクロバイオリアクターBioLector XTを用いた酸素要求量の高い微生物の好気培養
本アプリケーションノートでは、マイクロバイオリアクターBioLector XTを用いて、高酸素濃度環境下で微生物を培養する方法を紹介します。酸素濃度を最大50%に高めた空気を使用し、通常空気を供給した場合と培養結果を比較しました。BioLectorのマイクロ流体モジュールを用いて、さまざまな流加戦略による基質の開ループおよび閉ループ流加を精密に制御するとともに、実験期間を通じて培養液のpHを制御しました。通常空気条件と高酸素濃度条件で得られた結果の違いから、高酸素濃度での培養を可能にするマイクロバイオリアクターBioLector XTの利点と、それによって広がる培養の可能性が示されました。
翻訳について
本ページは英語版コンテンツをもとにAI翻訳および翻訳者による編集を経て日本語化しています。原文の内容を正確に反映するよう努めていますが、内容に差異がある場合は英語版をご参照ください。
はじめに
生産物の収量を最適化するため、生産菌株には遺伝子工学的・代謝工学的改変が施されます。さらに、発酵プロセスを最適化し、技術的限界までスケールアップすることで、時空間収率の最大化が図られます¹。
主な考慮事項として、固体および気体の基質や生成物の溶解性、不安定性、揮発性などが挙げられます。また、培地成分の多くは、高濃度になると生物系に対して阻害作用を示します。そのため、各栄養成分を阻害作用が生じない最大濃度で含む組成既知培地を用いても、大腸菌をバッチ培養した場合に到達できる細胞密度は約15 gcdw/Lにとどまります。したがって、増大するエネルギー源、炭素源、窒素源などの栄養要求を満たしながら基質阻害を回避するには、適切に設計された培地と流加戦略が必要です。²˒³
フェドバッチ培養が広く用いられるもう一つの大きな理由は、いわゆるグルコースのオーバーフロー代謝にあります。好気条件下であっても、増殖速度の速い微生物は発酵産物を生成します⁴。例えば、Escherichia coli(大腸菌)は酢酸、Bacillus subtilis はプロピオン酸、Lactococcus lactis は乳酸、Saccharomyces cerevisiae はエタノールを産生します⁵。こうした副生成物の生成は、一見すると非効率的です。呼吸代謝では発酵代謝よりも高いATP収率が得られるうえ、副生成物の形成によって培養中のさまざまな生理機能が阻害される可能性があるためです²˒⁶。それにもかかわらず、この現象は細菌、真菌、さらには哺乳類細胞を含む多様な生物に広く認められています。そのため、呼吸と発酵が並行して進行する理由を説明するために、数多くの仮説が提唱されてきました。これらには、TCA回路の抑制⁷、より効率的なプロテオーム資源の配分⁴、電子伝達系を収容する細胞内膜スペースの制約⁸などがあります。
しかし、多くの用途において、これらのオーバーフロー代謝産物は望ましくない副生成物とみなされるため、通常、微生物培養は特定の栄養源、特にグルコースを制限した流加条件下で行われます。こうした方法により、さまざまな微生物で 100 gcdw/L を超える高い細胞密度が達成されています。一方で、高細胞密度培養(HCDC: High Cell Density Cultivation)に適さず、到達可能な細胞乾燥重量濃度が数 g/L 程度にとどまる微生物もあります⁵。
好気培養では、酸素制限を回避するため、多くの場合、高い酸素移動速度が必要となります。例えば、Hornらは、大腸菌の細胞密度を145 gcdw/Lまで高めるため、培養期間を通じて溶存酸素を空気飽和度(a.s.: air saturation)の20%超に維持しました⁹。高細胞密度培養中、目標とする酸素レベルを達成・維持するには、供給する空気に純酸素を追加する、または空気を純酸素に置き換える必要が生じる場合があります²。溶存酸素濃度が臨界値を下回ると、比増殖速度が低下し、代謝が変化して、前述の酢酸、乳酸、エタノールなどの望ましくない代謝産物が生成されます。その結果、多くの生物で細胞密度と体積生産性が低下します¹⁰。一方、酸素濃度を高めたガスで通気すると、活性酸素種(ROS)の生成が増加する可能性もあります¹¹。
研究・産業のいずれの分野でも、培養液の溶存酸素(DO)濃度は、流加プロファイルを制御するトリガーとしても利用されてきました。このような閉ループ制御は、オンラインで測定したpH値やDO値に基づいた流加速度の調整などに用いられます⁵。DO値に基づくフィードバック制御は、多種多様な生物および生産物について報告されています⁹˒¹²–¹⁷。多くの場合、基質不足に伴う培養液のDOシグナルの急上昇をトリガーとして、基質の追加流加を行います¹⁸。
近年注目されている生物の1つに、Vibrio natriegens(別名Pseudomonas natriegensまたはBeneckea natriegens)があります。Vibrio natriegensは、これまでに知られている非病原性生物の中で最も増殖が速く、最適条件下では世代時間がわずか9.4分であることが報告されています¹˒¹⁹。大腸菌と同様にグラム陰性の通性嫌気性細菌ですが、急速な増殖を支える高いグルコースおよび酸素取り込み速度を特徴とします。多様な基質で増殖でき、グルコースを用いた好気培養では、オーバーフロー代謝産物として酢酸を分泌することが報告されています²⁰。
増殖速度が速いV. natriegensは、さまざまなバイオテクノロジー用途やクローニング操作に利用できる有望なシャーシであり、2016年以降は遺伝子操作も可能になっています²¹˒²²。現在では一連の遺伝子工学ツールが確立され、優れた生産菌株やプラットフォーム菌株の作製に利用されています。一方、今後さらに代謝工学を進めるには、基礎的な知見のさらなる蓄積が不可欠です²⁰。
2021年には、V. natriegensを用いた初のフェドバッチ高細胞密度培養(HCDC)が報告され、最大55 gcdw/Lのバイオマス濃度が得られました。フェドバッチ培養中には最大500 mmol·L⁻¹·h⁻¹の酸素取り込み速度が報告されており、培養中のDOを空気飽和度40%に維持するため、酸素濃度を60%に高めた空気を最大2 vvmで供給する必要がありました。
マイクロバイオリアクターBioLector XTは、このような酸素要求量の高い培養戦略やプロセスの研究および最適化に適した強力なプラットフォームです。µLスケールで並列フェドバッチ培養を行い、ウェルごとの流加速度を精密に制御できます。さらに、高度なガス供給リッドにより、供給ガスの組成と流量をきめ細かく制御できます。酸素濃度を最大100%まで高めた空気を使用することで、培養液に十分な酸素を供給し、特にフラワープレートを用いた培養で高い酸素移動速度を実現できます。
方法
Vibrio natriegens
Vibrio natriegens²³(DSMZ 759)の純粋培養株を、ライプニッツ研究所のDSMZ-German Collection of Microorganisms and Cell Cultures GmbHから入手しました。また、Escherichia coli BL21(DE3)も使用しました。
培地および流加液
Vibrio natriegensは、組成を調整し、pHを7.5に設定したVN最小培地¹で培養しました。培地組成(1 L当たり)は、3-(N-モルホリノ)プロパンスルホン酸(MOPS)42 g、(NH₄)₂SO₄ 5 g、NaCl 15 g、KH₂PO₄ 1 g、K₂HPO₄ 1 g、MgSO₄ 0.25 g、CaCl₂ 0.01 g、FeSO₄·7H₂O 16.4 mg、MnSO₄·H₂O 10 mg、CuSO₄·5H₂O 0.3 mg、ZnSO₄·7H₂O 1 mg、NiCl₂·6H₂O 0.02 mgとしました。さらに、接種前にオートクレーブ処理したグルコース溶液を添加し、最終濃度を10 g·L⁻¹としました。同じ組成の培地を、振とうフラスコでの前培養にも使用しました。
フェドバッチ培養には、HCDCに適した組成に調整した流加液¹⁹を使用しました。組成(1 L当たり)は、グルコース500 g、(NH₄)₂SO₄ 20 g、NaCl 15 g、KH₂PO₄ 20 g、K₂HPO₄ 20 g、MgSO₄ 5 g、CaCl₂ 0.01 g、FeSO₄·7H₂O 16.4 mg、MnSO₄·H₂O 10 mg、CuSO₄·5H₂O 0.3 mg、ZnSO₄·7H₂O 1 mg、NiCl₂·6H₂O 0.02 mgとしました。
大腸菌はWilms-MOPS培地で培養しました。培地組成(1 L当たり)は、3-(N-モルホリノ)プロパンスルホン酸(MOPS、C₇H₁₅NO₄S)10.5 g、K₂HPO₄ 3 g、(NH₄)₂SO₄ 5 g、NH₄Cl 0.5 g、Na₂SO₄ 2 g、MgSO₄·7H₂O 0.5 g、チアミン塩酸塩(C₁₂H₁₇ClN₄OS·HCl)0.01 g、ZnSO₄·7H₂O 0.54 mg、CuSO₄ 0.31 mg、MnSO₄·H₂O 0.3 mg、FeCl₃·6H₂O 41.76 mg、Titriplex III(C₁₀H₁₄N₂Na₂O₈·2H₂O)33.39 mg、CoCl₂·6H₂O 0.54 mg、CaCl₂·2H₂O 1.98 mg、およびグルコース20 g·L⁻¹としました。フェドバッチ培養には、グルコース417 g·L⁻¹、(NH₄)₂SO₄ 42 g·L⁻¹、NH₄Cl 4.2 g·L⁻¹を含む流加液を使用しました。
V. natriegensおよび大腸菌の培養では、いずれも5 mol·L⁻¹ NaOHを用いて片側pH制御を行いました。NaOH はMTPのB行にあるリザーバウェルから培養ウェルへ供給しました。A行は、高濃度グルコースを含むフェドバッチ用流加液に使用しました(マイクロ流路付きMTPの構成はFigure 2を参照)。
振とうフラスコでの前培養
マイクロバイオリアクターBioLector XTで行う本培養には、37°C、280 rpm(振とう径25 mm)で数時間培養した前培養液を接種しました。大腸菌の前培養には、上記のWilms-MOPS培地を用いましたが、MOPS濃度は42 g·L⁻¹に高めました。一方、Vibrio natriegensでは、VN培地の組成は変更しませんでした。いずれも、新たに融解した凍結培養物を15 mLの培地に接種し、綿栓付き250 mL振とうフラスコで培養しました。
大腸菌およびV. natriegensの前培養時間は、それぞれ4時間および3時間とし、指数増殖期となるようにしました。その後、各培養液のOD₆₀₀を測定し、接種に必要な液量を算出しました。
BioLector XTでの培養
実験には、マイクロ流体モジュールを搭載したマイクロバイオリアクターBioLector XTを使用しました。培養は、Gen2 マイクロ流路付きフラワープレート(品番:M2P-MTPMF32C-BOH1)で行い、マイクロ流体実験に適したガス透過性シーリングフォイル(品番:M2P-F-RSMF32-1)で密封しました。主要培養パラメータをリアルタイムで評価するため、バイオマス(ID:501)、pH(HP8、ID:502)、DO(PSt3、ID:503)の各フィルターモジュールを装着しました。BioLector XTシステムのガス供給リッド²⁴では、供給ガス中の酸素濃度を0~100%または二酸化炭素濃度最大12%の範囲で、供給ガスの組成を精密に制御できます。また、フラワープレートを使用することで、最大限の(酸素)移動速度を確保できます。本実験では、通常の空気(酸素21%)と酸素濃度を最大50%に高めた空気を用い、いずれも流量を50 mL·min⁻¹に固定しました。高酸素濃度条件では酸素アップレギュレーションガス供給モードを使用し、最初の1時間で酸素濃度を徐々に上昇させ、その後は50%に維持しました。

V. natriegensは、初期OD₆₀₀が0. 1となるよう前培養液を接種しました。大腸菌は、初期OD₆₀₀が0.5となるよう接種しました。すべての培養ウェル(C~F行)の初期液量は800 µLとしました。使用したフラワープレートでは、振とう速度1,200 rpmにおける最大培養液量は1,400 µLです。リザーバウェル(A、B行)の最大容量は1,800 µLです。A行には必要な量のグルコース流加液を、B行には1,200 µLの塩基溶液を充填しました。本アプリケーションノートで実施した培養では、いずれのリザーバウェルも空になることはありませんでした。
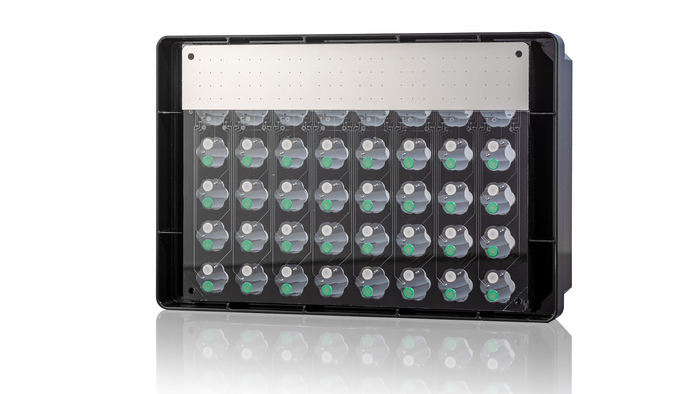
Figure 2. 下側から見たGen2マイクロ流路付きマイクロプレート。下側4行(C~F行)は32個の培養ウェルで、各ウェルの底面にはpHおよびDOを光学測定するためのオプトードが2個取り付けられています。上側2行はリザーバウェルで、この図ではデフレクションリミッターによって一部が覆われています。各リザーバウェルは、ウェル間を通るマイクロ流路によって、同じ列の4つの培養ウェルに接続されています。
すべての大腸菌培養で、pH設定値を7.2(BioLectionソフトウエアのプリセットPI設定:Medium)としました。実験開始直後にシステムが安定するまでの時間を確保するため、片側pH制御は1時間後に開始しました。V. natriegensの培養では設定値を7.5としました。 VN最小培地は塩濃度が高いため、カスタムpHキャリブレーションデータセットを使用する必要がありました²⁵。V. natriegensの急速な増殖特性に適切に対応するため、PI設定をカスタマイズし、最小容量0.1 µL·cycle⁻¹、最大容量15 µL·cycle⁻¹、Pバンド 0.2、インテグレーター 1、開始容量0.2 µL、デッドバンド0.05²⁶としました。
グルコース流加は、大腸菌では4時間後、V. natriegensでは3.5時間後に開始しました。同様の条件で実施した過去のバッチ培養の結果から、接種前に培地へ添加したグルコースは、この時点で(ほぼ)枯渇していると考えられます。また、時間をトリガーとした流加開始により、通常空気条件と高酸素濃度条件で良好な再現性が得られ、適切な比較が可能になりました。
マイクロタイタープレート(MTP)では、複数の流加プロファイルおよび流加戦略を使用しました。一部のウェルではグルコースを流加せず、pH制御下でバッチ培養を行いました。フェドバッチ培養には、連続流加プロファイルとシグナルトリガー式流加プロファイルの両方を設計しました。連続流加では、次式を用いてBioLectionソフトウエア上で流加速度を正確に設定できます。式中のパラメータA、B、C、Dは、それぞれ個別に指定できます。
dV / dt = A+B*t+C*eD*t
本アプリケーションノートでは、一定流加速度と直線的に増加する流加速度のみを適用したため、いずれの戦略でもパラメータCおよびDを0に設定しました。AおよびBの設定値はTable 1に示します。シグナルトリガー式流加では、測定した溶存酸素濃度が6%を超えるたびに、4 µLのグルコース流加液を培養液に添加するよう設計しました。グルコース流加液や塩基の添加量によってウェル間に生じる培養液量の差を考慮し、すべてのオンラインバイオマス測定値を実際の培養液量に基づいて補正しました。
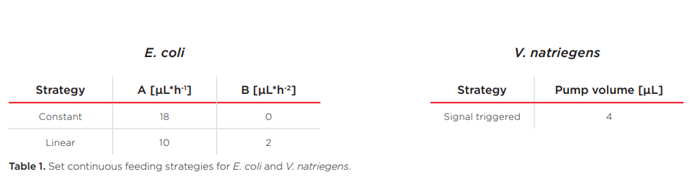
結果
高酸素濃度条件で、大腸菌の培養性能が向上
通常の空気と酸素濃度を高めた空気を用いた大腸菌フェドバッチ培養を比較し、酸素アップレギュレーションガス供給モードによって、マイクロバイオリアクターでより幅広い培養条件に対応できること、および培養経過に及ぼす影響を示しました。一定速度で連続流加した大腸菌培養の結果をFigure 3に示します。
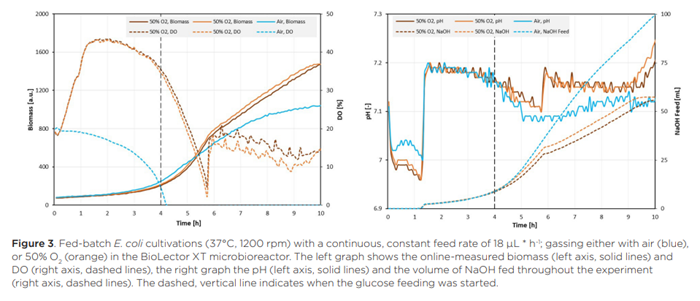
Figure 3左図の溶存酸素の推移から、酸素濃度を高めたガスの供給が培養に及ぼす影響が明確に示されています。供給ガス中の酸素濃度を徐々に高めた結果、最初の1時間はDOシグナルも上昇しました。その後、グルコース存在下で大腸菌が好気的に増殖するにつれて、すべての培養でDOが低下し始めました。4時間後にグルコース流加を開始すると、まもなく通常の空気では培養液に十分な酸素を供給できなくなり、その後は実験終了まで酸素制限状態が続きました。一方、酸素アップレギュレーション条件では、培養開始後5.75時間まで、指数増殖に十分な酸素が供給されました。通常空気条件より長い指数増殖期の後、直線的な増殖期が観察されました。この段階では、一定速度でのグルコース流加では指数増殖を維持できなくなり、その後は実験終了までグルコース制限下で増殖した可能性が高いと考えられます。それでも、最終的なバイオマス濃度は、通常空気条件で酸素制限となった培養よりも高くなりました。
右図は、これらの実験におけるpHと、pH制御に使用したNaOHの総量を示しています。最初の4時間は両条件で非常によく似た推移を示しましたが、フェドバッチ段階の開始後には酸素制限の影響が認められました。酸素制限条件では、より多量のアルカリを必要としたにもかかわらず、酸素制限の発生後にはpHが設定値を約0.1下回りました。これは、(嫌気的)オーバーフロー代謝によって、酸素制限のない培養よりも酢酸などの代謝副産物が多く生成され、培養液が酸性化したためと考えられます。
直線的に増加する流加プロファイルを用いた大腸菌培養でも、一定流加プロファイルの場合と非常によく似た結果が得られました(Figure 4)。
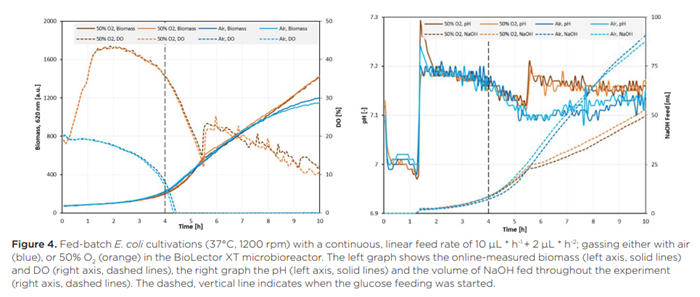
ここでも、通常の空気を供給した培養ではグルコース流加開始直後に酸素制限となりましたが、酸素濃度を高めた空気を供給することで、酸素制限を回避できました。ただしFigure 3に示した一定流加条件と比べると、酸素濃度を高めた条件ではDOシグナルの低下幅が小さく、局所的な最小値へも、やや早く(約5.5時間後)到達する結果となりました。これは、両培養で用いた流加プロファイルの違いによるものと考えらます。流加開始後の最初の4時間は、一定流加プロファイルのほうが直線的に増加する流加プロファイルよりも流加速度が高いため、グルコース供給が増殖の律速要因となるまで、指数増殖期が長く続きました。一定流加ウェルと同様に、酸素制限下での代謝に伴い、培養液へのNaOH供給量が増加しました。このことは、大腸菌の好気増殖と嫌気増殖における代謝の違いと、酸素濃度を高めたガスの供給が培養に及ぼす影響を示しています。
シグナルトリガー式流加によるV. natriegensの培養
Vibrio natriegensの培養では、培養液中の酸素レベルに基づくシグナルトリガー式グルコース流加を用い、酸素制限を回避しながら高いグルコース消費速度を実現する戦略を検討しました。適切に設定することで、酸素制限を生じさせることなく、グルコース流加速度をほぼ最大限まで高められると考えられます。そのため、グルコース流加のトリガーをDO>6%に設定し、流加イベントごとに4 µLのグルコース流加液を培養液に添加しました。培養は通常空気条件と高酸素濃度条件で行いました。高酸素濃度条件では、グルコース流加が酸素レベルに応じて作動するため、より良好な培養結果が得られると期待されます。Figure 5に培養結果を示します。
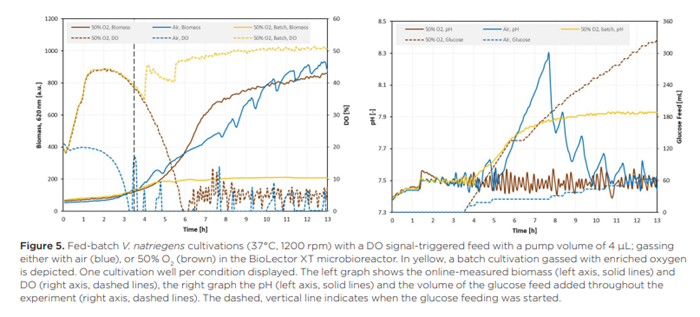
Figure 5から、高酸素濃度条件では培養経過が明確に異なることが分かります。初期バッチ段階で、細胞はすでに多量のグルコースを消費しており、酸素を追加供給しなければ酸素制限となるほどでした。4時間後には、培養開始時に添加したグルコースが完全に枯渇していました。これは、バッチ培養データ(Figure 5の黄色で示したデータ)におけるDO値とpH値の上昇から確認できます。グルコース流加制御は、培養開始3.5時間後に有効化しました。その時点では通常空気条件と高酸素濃度条件のいずれもDO値が6%を超えていたため、両培養で直ちにグルコース流加が開始されました。したがって、最初の約15分間は両条件で流加量は同じでしたが、通常空気条件ではDOシグナルが急速に6%未満まで低下し、流加トリガーの条件を満たさなくなったため、グルコース流加が一時停止しました。
酸素濃度を50%とした培養では、供給ガス中の酸素濃度が高いため、DOシグナルが約5.75時間にわたって6%を上回りました。培養開始3.5時間後にグルコース流加を開始したことで、バッチ培養と比べて指数増殖期が延長され、最終的に培養開始約6時間後に酸素制限となりました。グルコース流加は停止し、培養開始6.5時間後にDO値が再び6%の閾値を上回ると再開されました。その後、実験終了まで、グルコース流加速度と強く相関してバイオマスが直線的に増加し、DOトリガー式グルコース流加が意図どおり作動しました。すなわち、DOシグナルがトリガー閾値を上回るたびにグルコースが培養液に添加され、グルコースの好気代謝によってDOシグナルが低下しました。グルコースが枯渇すると溶存酸素濃度が再び上昇し、次の流加イベントが開始されました。
その後、実験終了までの6.5時間にわたってこの流加ループが30回以上繰り返され、約200 µLのグルコース流加液が培養液に添加されましたが、いずれの流加イベントでも培養液中の溶存酸素が完全に枯渇することはありませんでした。この結果は、フラワープレートへの高酸素濃度ガスの供給によって高い酸素移動速度が得られ、DOトリガー式流加戦略が意図どおり機能し、オンライン測定に基づいてグルコース流加速度を厳密に制御できたことを示しています。また、酸素制限を引き起こすことなくグルコースを(ほぼ)連続的に流加することで、代謝が代謝副産物の消費へと切り替わるのを防ぐことができます。このことも、培養期間を通じた良好なpH制御につながります。
高酸素濃度条件では、通常空気条件と比べてグルコース流加量が5倍以上となりました。この差の一因は、通常空気条件では流加開始直後に酸素制限となり、流加が一時停止したことです。この影響は流加開始直後だけでなく、実験全体を通じて認められ、通常空気条件では各流加パルス後に溶存酸素が完全に枯渇した状態がより長く続きました。こうした流加プロファイルはバイオマスの不規則な推移にも反映され、各流加イベント直後にはシグナルの急激な増加が見られました。さらに、酸素制限期にはpHが上昇しました。グルコース枯渇後のバッチ培養でも同様のpH上昇が見られたことから、この間、菌体は一時的にオーバーフロー代謝によって生成した酢酸などを利用して増殖していることが示唆されます。しかし、その後pHが低下する一方でバイオマスシグナルが上昇したことから、菌体は再びグルコースを利用する代謝へ切り替わったと考えられます。このような代謝の切り替えは少なくとも7回繰り返されたとみられ、通常空気条件ではpH値が設定値から大きく外れて変動しました。その時々で代謝が切り替わるため、培養の制御が非常に困難になりました。
通常空気条件ではグルコース流加量が少なかったにもかかわらず、ここに示した2つのフェドバッチ培養では、V. natriegensの最終バイオマス濃度は非常に近い値となりました。その一因として、酸素制限期に代謝副産物を利用して増殖したことで、グルコース流加量の少ない分が補われた可能性があります。一方、ここに示した高酸素濃度条件の培養では、このような二段増殖への移行は認められませんでした。一方、高酸素濃度条件では、はるかに多くのグルコースが供給されました。グルコース流加後に酸素濃度が低下したことから、供給したグルコースは速やかに消費されたと考えられます。グルコース供給量に対してバイオマス形成量が比較的少なかったことから、通常空気条件よりもグルコースからバイオマスへの収率が低く、オーバーフロー代謝産物などの生成速度が高かった可能性があります。
総じて、DOトリガー式フェドバッチ戦略は両培養で意図どおり機能しました。ここに示した高酸素濃度条件は、高バイオマス生産に向けて最適化したものではありませんが、酸素制限を生じさせることなく高いグルコース取り込み速度を実現できました。また、通常空気条件で見られた代謝の切り替えも生じず、より制御しやすく予測可能な培養経過が得られました。以上の結果から、高酸素濃度ガスの供給が微生物培養に及ぼす効果が実証されました。BioLector XTが可能にする多様かつ精密な培養戦略と組み合わせることで、さらなる研究の発展につながることが期待されます。
おわりに
本アプリケーションノートでは、好気培養プロセスの研究および最適化におけるマイクロバイオリアクターBioLector XTの可能性を検討しました。マイクロ流体モジュールと酸素アップレギュレーションガス供給モードの組み合わせは、培養に悪影響を及ぼす酸素制限を回避しながらさまざまな流加戦略を検討し、より高い細胞密度と生産性を実現するための最適なプロセスパラメータを探索するうえで強力なツールとなります。フラワープレートと高酸素濃度条件を使用することで、大腸菌やV. natriegensのような酸素消費量の多い生物に十分な酸素を供給し、溶存酸素の完全な枯渇を防ぎながら、培養性能とロセス制御を向上できました。
参考文献
- Hoffart E, Grenz S, Lange J, et al. High Substrate Uptake Rates Empower Vibrio natriegens as Production Host for Industrial Biotechnology. Appl Environ Microbiol. 2017;83(22).
- Shiloach J, Fass R. Growing E. coli to high cell density--a historical perspective on method development. Biotechnol Adv. 2005;23(5):345-57.
- Lee SY. High cell-density culture of Escherichia coli. Trends in Biotechnology. 1996;14(3):98-105.
- Basan M, Hui S, Okano H, et al. Overflow metabolism in Escherichia coli results from efficient proteome allocation. Nature. 2015;528(7580):99-104.
- Guthke R, Riesenberg D. High cell density cultivaiton of microorganisms. Applied Microbiology and Biotechnology. 1999;51.
- Xu B, Jahic M, Enfors S-O. Modelling of Overflow Metabolism in Batch and Fed Batch Cultures of Escherichia coli. Biotechnol Prog 1999;15(1).
- Vemuri GN, Altman E, Sangurdekar DP, et al. Overflow Metabolism in Escherichia coli during Steady-State Growth: Transcriptional Regulation and Effect of the Redox Ratio. Applied and Environmental Microbiology. 2006;72(5):3653-61.
- Szenk M, Dill KA, De Graff AMR. Why Do Fast-Growing Bacteria Enter Overflow Metabolism? Testing the Membrane Real Estate Hypothesis. Cell Systems. 2017;5(2):95-104.
- Horn U, Strittmatter W, Krebber A, et al. High volumetric yields of functional dimeric miniantibodies in Escherichia coli, using an optimized expression vector and high-cell-density fermentation under non-limited growth conditions. Applied Microbiology and Biotechnology. 1996;46(5):524-32.
- Subramaniam R. High-density Cultivation in the Production of Microbial Products. Chemical and Biochemical Engineering Quarterly. 2019;32(4):451-64.
- Baez A, Shiloach J. Effect of elevated oxygen concentration on bacteria, yeasts, and cells propagated for production of biological compounds. Microbial Cell Factories. 2014;13(1).
- Chen W, Graham C, Ciccarelli RB. Automated fed-batch fermentation with feed-back controls based on dissolved oxygen (DO) and pH for production of DNA vaccines. Journal of Industrial Microbiology and Biotechnology. 1997;18(1):43-8
- Kole MM, Draper I, Gerson DF. Protease production by Bacillus subtilis in oxygen-controlled, glucose fed-batch fermentations. Applied Microbiology and Biotechnology. 1988;28(4-5):404-8.
- Kuprijanov A, Gnoth S, Simutis R, et al. Advanced control of dissolved oxygen concentration in fed batch cultures during recombinant protein production. Applied microbiology and biotechnology. 2009;82(2):221-9.
- Lee J, Lee SY, Park S, et al. Control of fed-batch fermentations. Biotechnology Advances. 1999;17(1):29-48.
- Bazsefidpar S, Mokhtarani B, Panahi R, et al. Overproduction of rhamnolipid by fed-batch cultivation of Pseudomonas aeruginosa in a lab-scale fermenter under tight DO control. Biodegradation. 2019;30(1):59-69.
- Erian AM, Freitag P, Gibisch M, et al. High rate 2,3-butanediol production with Vibrio natriegens. Bioresource Technology Reports. 2020;10:100408.
- Yang F-C, Maa D-W. Fed-batch culture of yeast Saccharomyces cerevisiae with a DO-stat method by a fuzzy controller. Bioprocess Engineering. 1998;18(2):79-82.
- Thiele I, Gutschmann B, Aulich L, et al. High-cell-density fed-batch cultivations of Vibrio natriegens. Biotechnol Lett. 2021;43(9):1723-33.
- Thoma F, Blombach B. Metabolic engineering of Vibrio natriegens. Essays Biochem. 2021;65(2):381-92.
- Lee HH, Ostrov N, Wong BG, et al. Vibrio natriegens , a new genomic powerhouse. 2016.
- Weinstock MT, Hesek ED, Wilson CM, et al. Vibrio natriegens as a fast-growing host for molecular biology. Nature Methods. 2016;13(10):849-51.
- Payne WJ, Eagon RG, Williams AK. Some observations on the physiology of Pseudomonas natriegens nov. spec. Antonie Van Leeuwenhoek. 1961;27(1):121-8.
- Beckman Coulter Life Sciences. Using the BioLector XT Microbioreactor Gassing Lid. 2021.
- Beckman Coulter Life Sciences. Customized calibration of pH Optodes. 2022.
- Beckman Coulter Life Sciences. Adjustment of the pH control settings in the BioLector Pro. 2021.
お問い合わせ
製品に関するご質問、ご不明な点は、
下記よりお気軽にお問合せください。
