
RoboLectorを用いたPseudomonas putidaの適応実験室進化
要約
本アプリケーションノートでは、RoboLectorを用いて Pseudomonas putida KT2440 の適応実験室進化(ALE)を自動化し、酢酸を唯一の炭素源とした条件での増殖性能向上を評価した事例を紹介します。RpboLector-ALE後では遅滞時間が約1.7時間短縮され、RoboLectorが高効率かつハイスループットな生産株改良ツールとして有効であることが示されました。
翻訳について
本ページは英語版コンテンツをもとにAI翻訳および翻訳者による編集を経て日本語化しています。原文の内容を正確に反映するよう努めていますが、内容に差異がある場合は英語版をご参照ください。
Anna Korona1, Melanie Filbig2, Till Tiso2, Lars M. Blank2
1m2p-labs GmbH
2Institute of Applied Microbiology - iAMB, RWTH Aachen University
はじめに
進化工学は、バイオテクノロジー分野において、生産株の特性を改良するために用いられています。特にその基盤となるメカニズムがまだ十分に解明されていない場合には、代謝工学を補完する手法となります[1]。適応実験室進化(Adaptive Laboratory Evolution:ALE)は、バイオテクノロジー分野で広く利用されている手法です。特に、標的を限定しない生産株の改良に有効であり、バイオマス収量の向上や、最終的には工業生産におけるコスト削減にも貢献します[2]。さらに、ハイスループットDNAシーケンシングと組み合わせることで、ALEを用いて分子メカニズムを明らかにすることができます。Couch ら (2019)は、ALEを用いてP. putidaのエチレングリコール代謝に新たな知見をもたらしました[4]。
微生物を用いたALE実験では、改良された表現型を示す微生物を選択するため、明確に定義された条件下で微生物を培養します。培養期間は数日から数週間、学術研究では数年に及ぶ場合があります。微生物がALE研究に適している理由として、(a)必要とする栄養が単純であること、(b)多くの微生物を実験室で容易に培養できること、(c)倍加時間が短く、比較的短期間で数百世代にわたる増殖が可能であることなどが挙げられます[5]。ALEの基本原理は、培養に選択圧をかけることです[2]。最大増殖率(μmax)、特定の化合物の毒性濃度下での生存率、絶対バイオマス収量などが、適応度の指標として用いられます[5]。多くの場合、増殖速度の向上や遅行期の短縮が選択基準となります。これは、そのような細胞が培養集団内で優勢となるためです。一般的に、ALE実験は振とうフラスコまたは実験室用バイオリアクターを用い、連続培養または反復バッチ培養のいずれかで行われます。しかし、実験時間が長く、手動操作も多いため、煩雑でミスが生じやすい手法です。[2]プロセスを自動化することで、 実験全体効率化できるだけでなく、生物学的複製の実施も可能になります[6] 。
微生物培養システムであるRoboLectorは、自動化されたハイスループットALEに最適なツールです。振とうフラスコを用いた時間のかかる手動セットアップが不要になります。Figure 1に手動ALEと自動ALEの概略を示します。
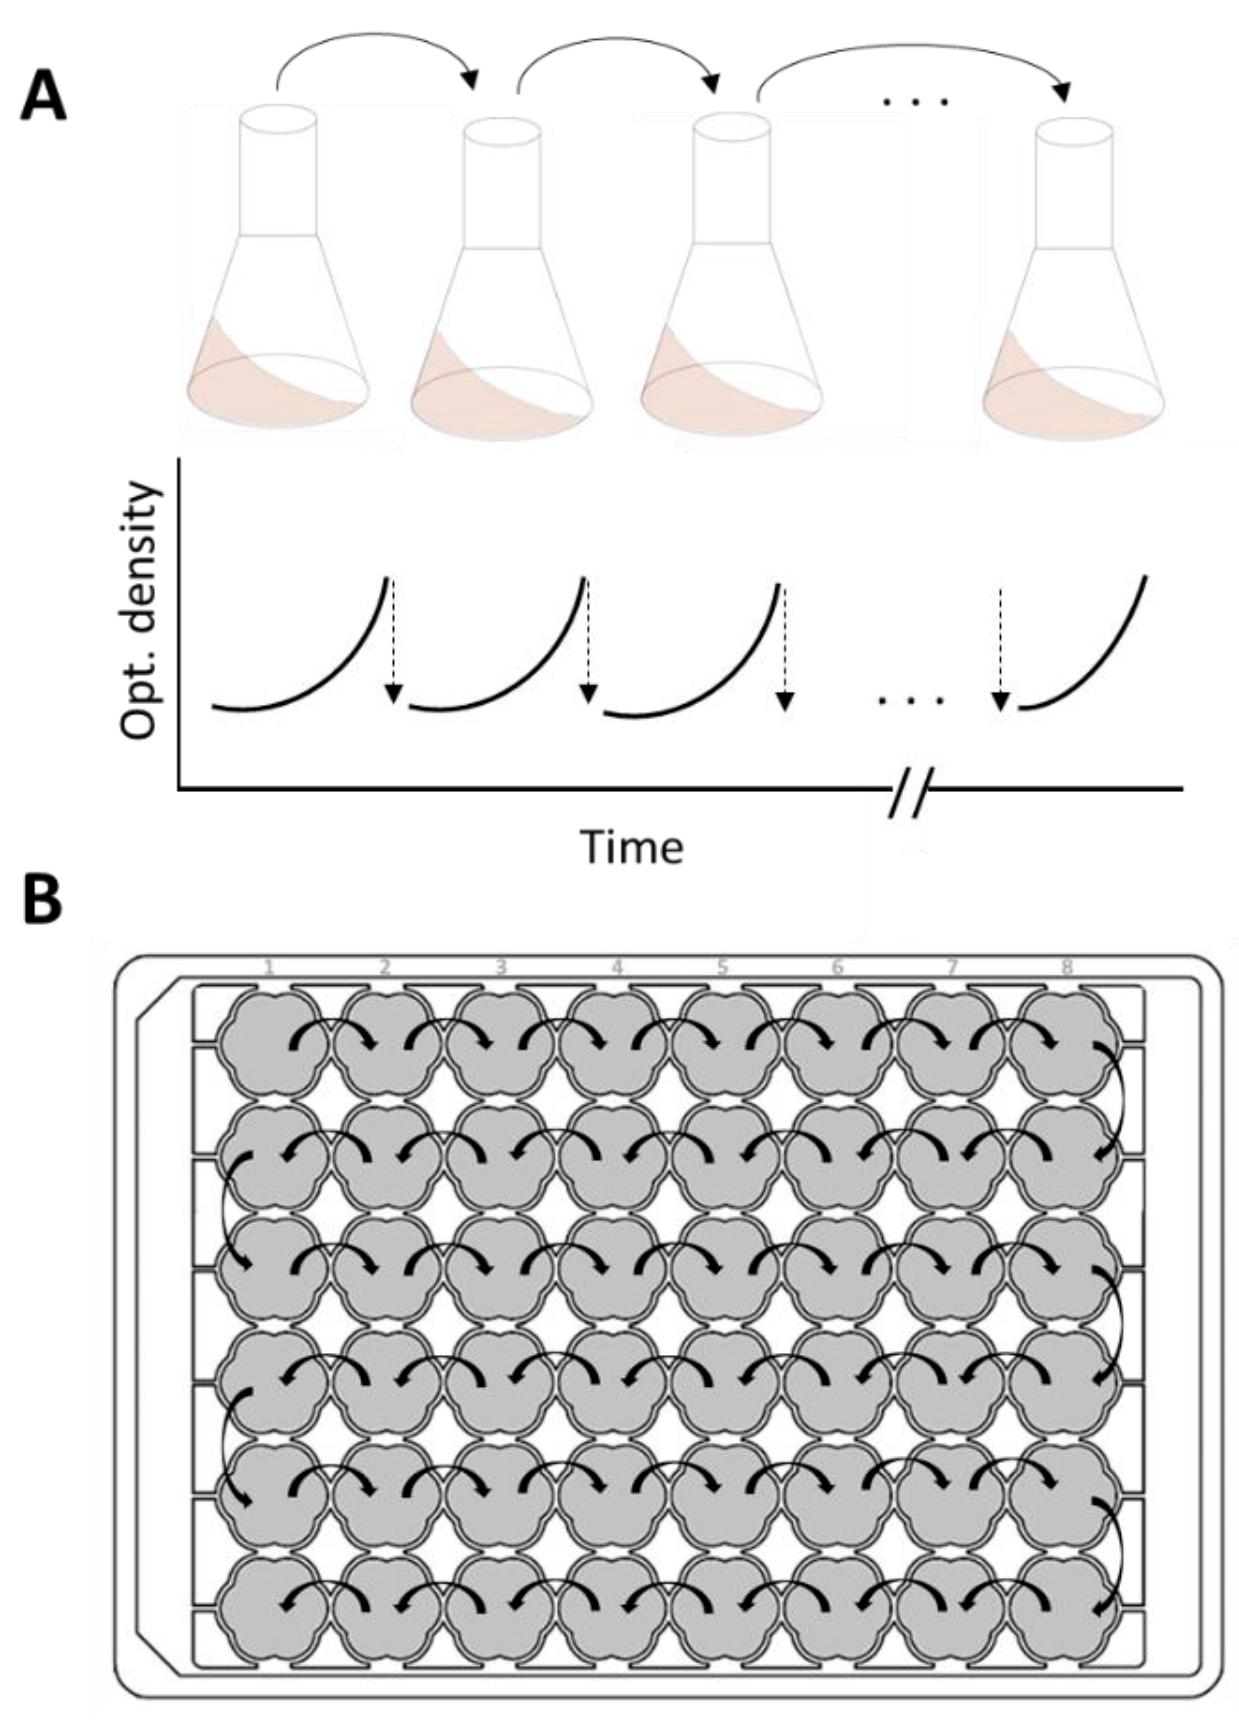
本アプリケーションノートでは、培養培地中で酢酸を唯一のエネルギー源および炭素源とする条件下での増殖改善を目的とした、RoboLectorを用いるPseudomonas putida KT2440野生株(WT)の実験室進化実験を紹介します。
P. putida KT2440は桿状のグラム陰性細菌であり、各種化合物を製造する工業プロセスへの応用が期待されるとともに、実験室で広く用いられるモデル微生物でもあります[7,8,9]。芳香族化合物、糖脂質、生体高分子、酸、アルコールなどの生産に利用できるほか、糖類、アルコール、有機酸、脂肪酸、アミノ酸、芳香族化合物[11]など、多様な基質を代謝できます[9, 10]。
付加価値の高い化合物を生産するための有望な基質の1つが酢酸です。酢酸は安価な低分子有機酸であり、食品産業と競合しないという利点があります[12]。バイオマス加水分解物や各種廃棄物ストリーム中に存在するほか、CO2から製造することも可能です [13,14]。P. putidaは本来、酢酸を代謝できますが[15]、C2化合物での増殖は遅滞期が長く、増殖速度も低いため[16]、バイオプロセスには最適とは言えません。
方法
BioLectorを用いたPseudomonas putidaの標準培養:P. putida KT2440 野生株(WT)を、48ウェル丸形ウェルプレートを用いて30°C、1000 rpmで培養しました。各培養ウェルの培養液量は1,500 µLとしました。ミネラル塩培地(MSM)に8 g/Lの酢酸塩を添加しました。バイオマスシグナル(散乱光)[a.u.]、pH[-]、溶存酸素[%]をオンラインで測定しました。
Growth Profiler®を用いた手動ALE:酢酸でのP. putidaの増殖挙動を改善するため、まず24ディープウェルプレート(SystemDuetz; Enzyscreen B.V., Heemstede, the Netherlands)を用いた手動ALEを実施しました。このため、2段階の前培養を行いました。まず、P. putida KT2440 WTの凍結保存株をLB培地に接種し、30°Cで一晩培養しました。この培養液をMSM(酢酸塩5 g/L添加)に接種し、 30°Cで一晩培養しました。最後に、手動ALE実験では、MSM(酢酸塩8 g/L添加)12 mLも2回目の前培養液を接種し、24ディープウェルプレートの8ウェル(#1~#8)に各1.5 mLずつ分注しました。培養は225 rpm、30°Cで行い、12時間ごとに、新鮮なMSM(酢酸塩8 g/L添加)に手動で移し替えました。今回のALEで得られた8系統について、RoboLector XLを用いた後続のALE実験に使用するため、それぞれについて凍結保存株を作製しました。
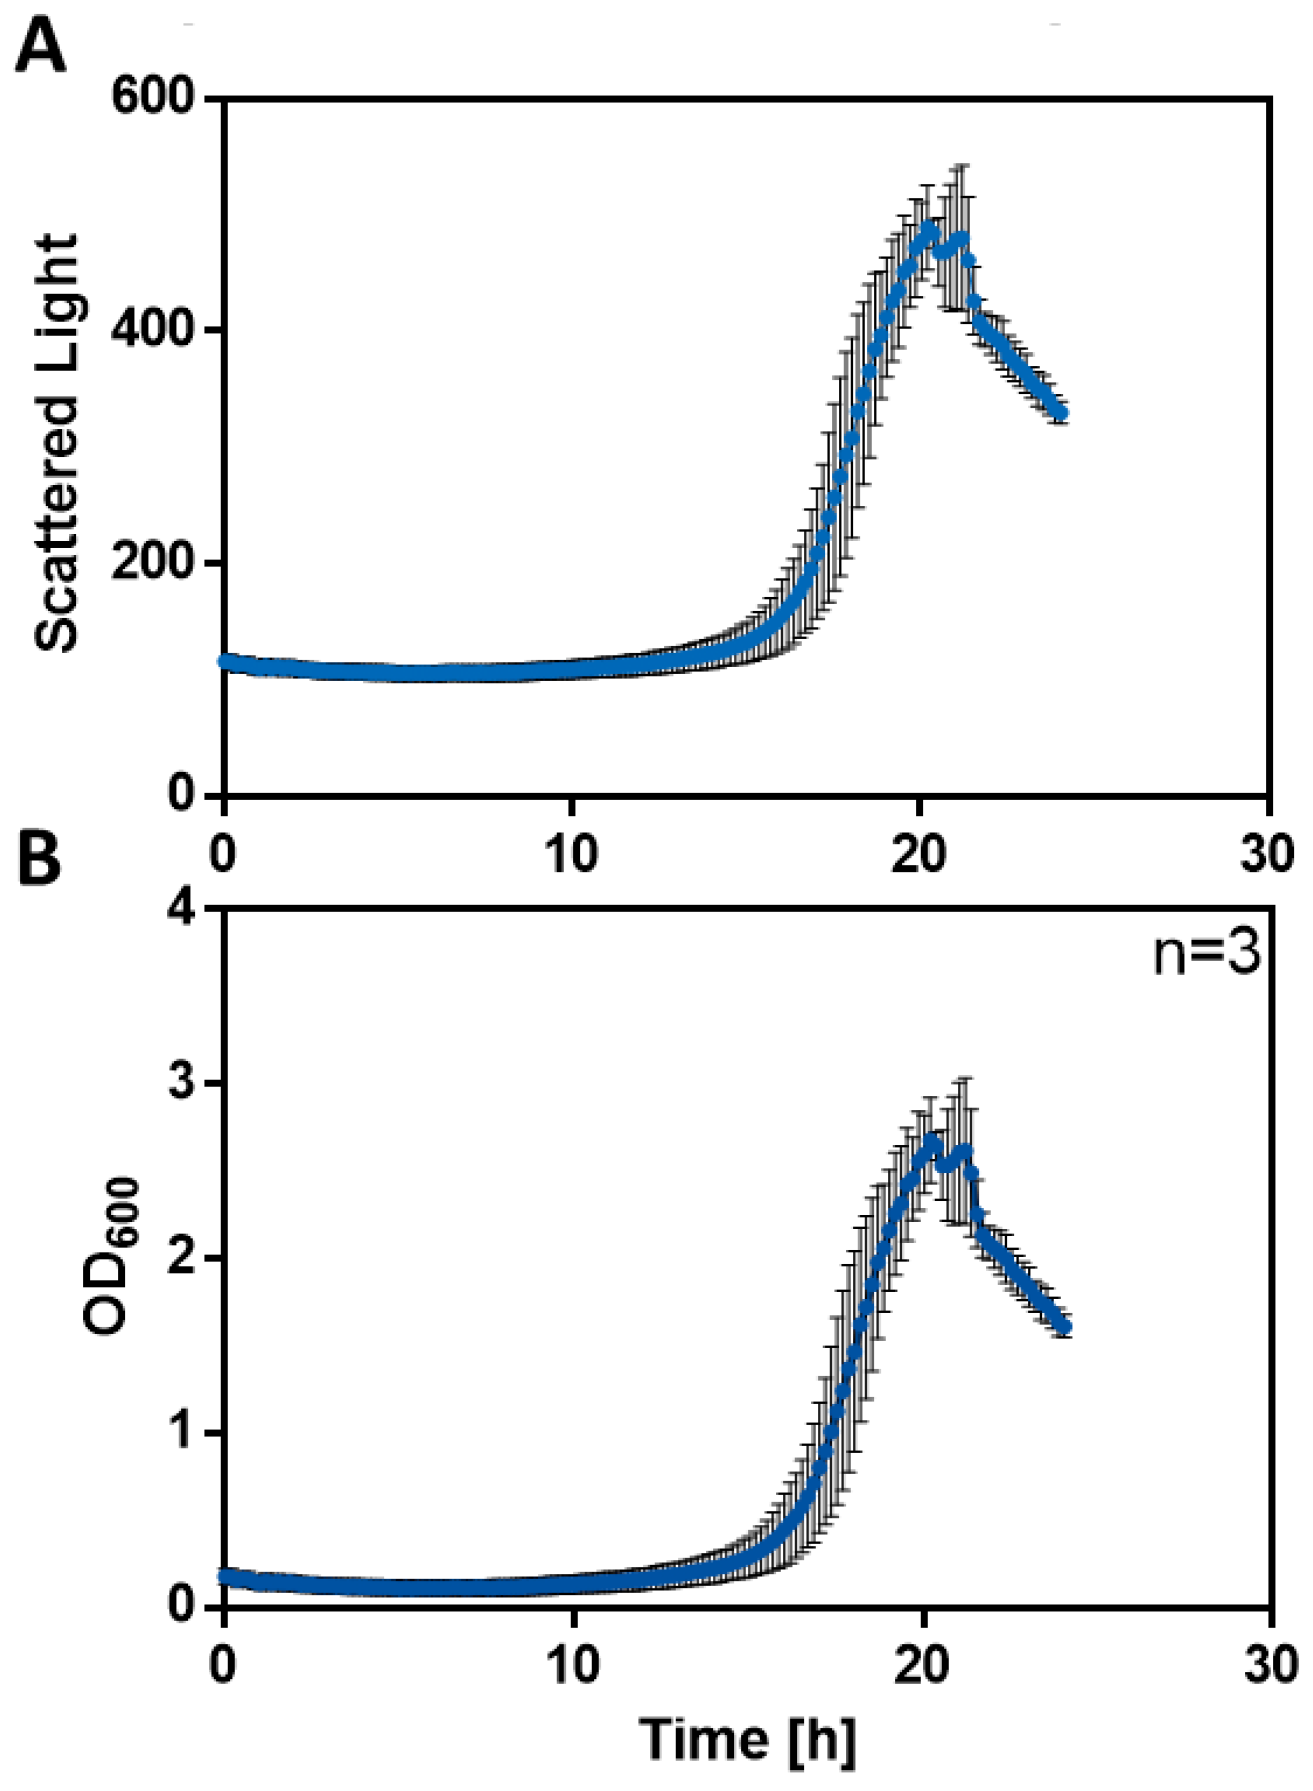
RoboLector XL-8を用いた自動ALE:48ウェル丸形ウェルプレートで、手動ALEから得られた8系統(#1~#8)をMTPの8列で同時に培養しました。この実験の前に、8系統それぞれについて2段階の前培養を行いました。1回目の前培養では、10 mLのLB培地に接種し、30°Cで一晩培養しました。2回目の前培養は酢酸塩を5 g/L添加したMSMで行い、30°Cで一晩培養しました。最後に、酢酸塩を8 g/L添加したMSM を分注した丸形ウェルプレートの8ウェル(A01~A08)に接種しました。バイオマスシグナル300 a.u.はOD=1.5に相当し(事前のキャリブレーション実験で求めた値)、この値を次の行のウェルへ接種するトリガーとしました。散乱光シグナルおよびそれに対応するOD値をFigure 2に示します。
接種する全てのウェルに、あらかじめ、酢酸を8 g/L添加したMSMを 1,450 µLずつ分注しました。MTPは、蒸発抑制機能および穿孔シリコン層付きガス透過性シーリングフォイル(F-GPRS48-10)で密封し、BioLectorの培養チャンバーに設置しました。
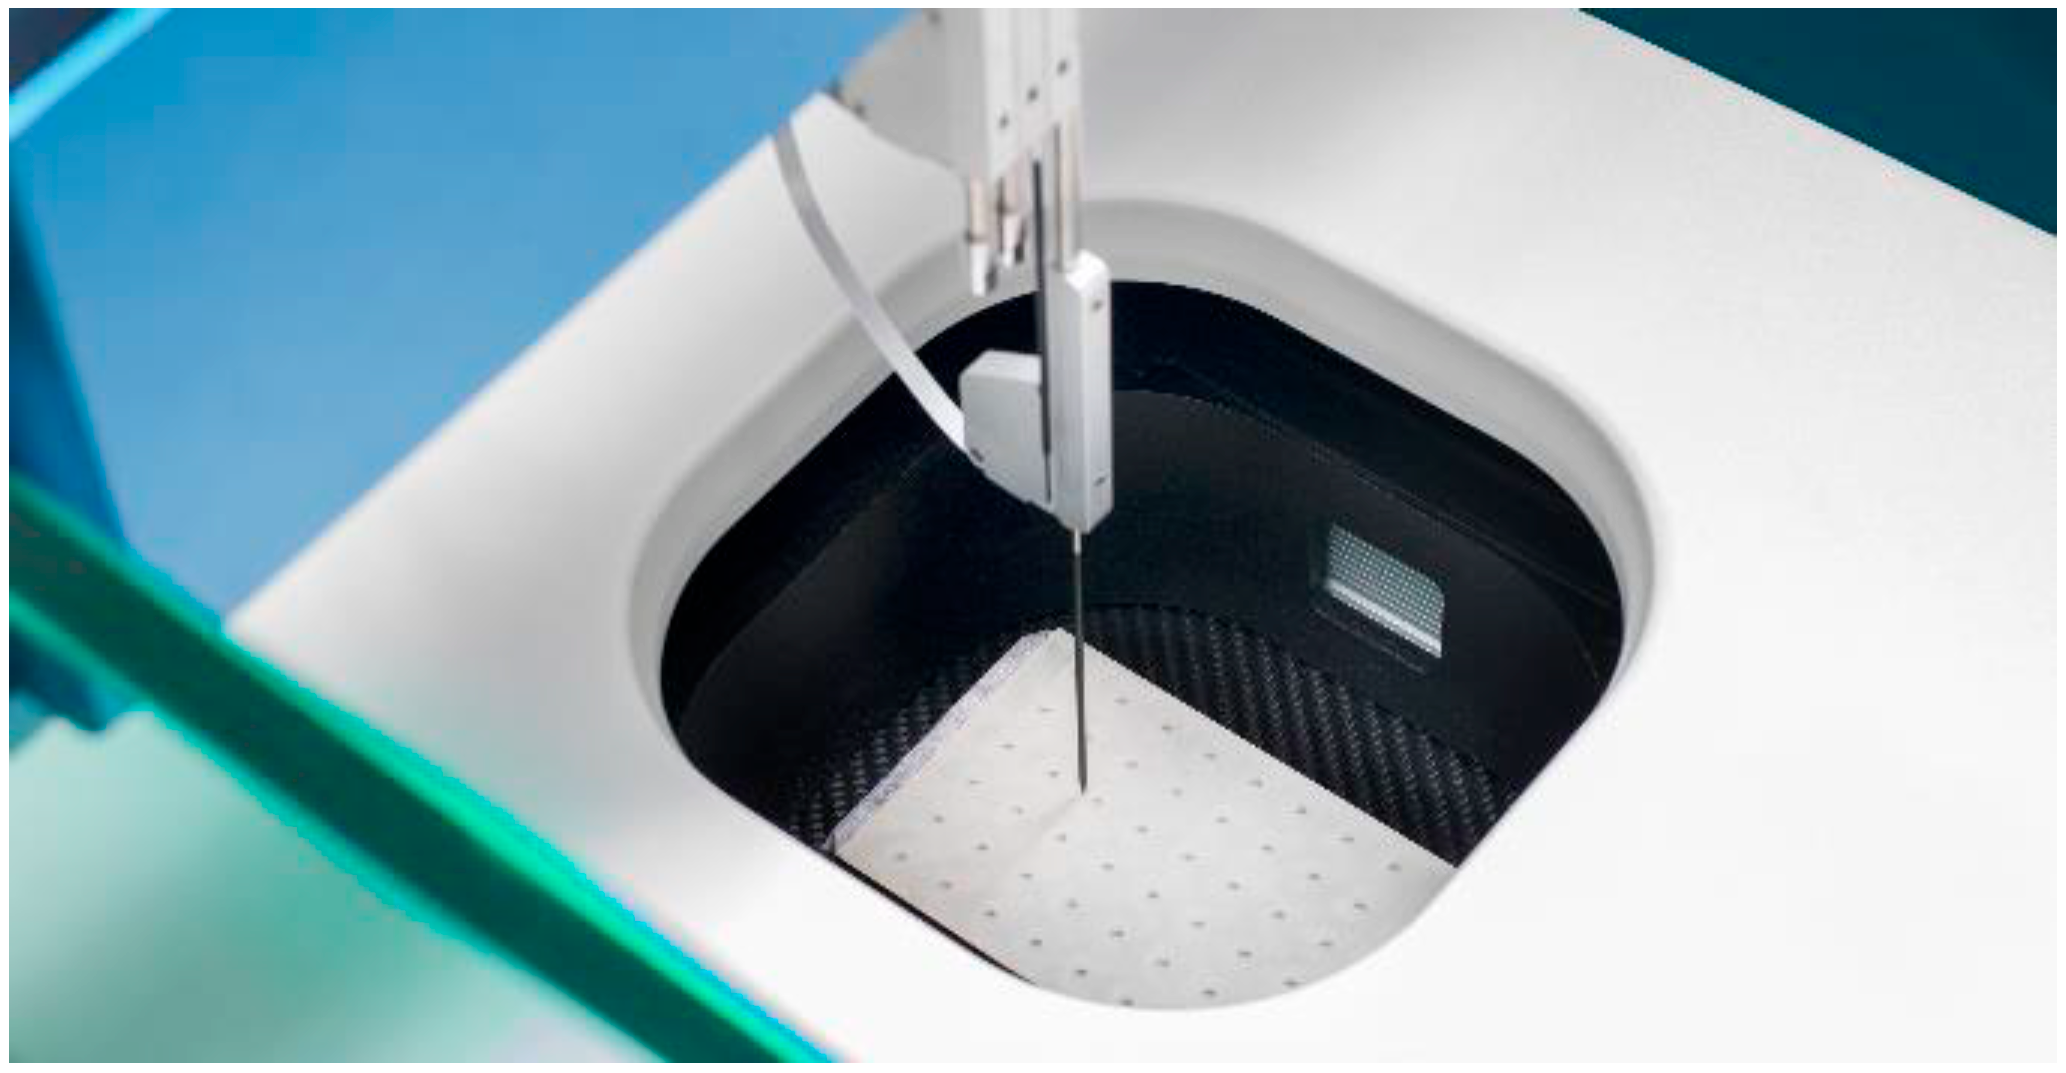
すべての接種操作はRoboLector XL-8で自動的に実施されました。Figure 3に示すように、各ステップでは、上段のウェルから培養液50 µLを採取し、RoboLectorの洗浄可能なピペッティングチップを用いて、その直下のウェルへ接種しました。
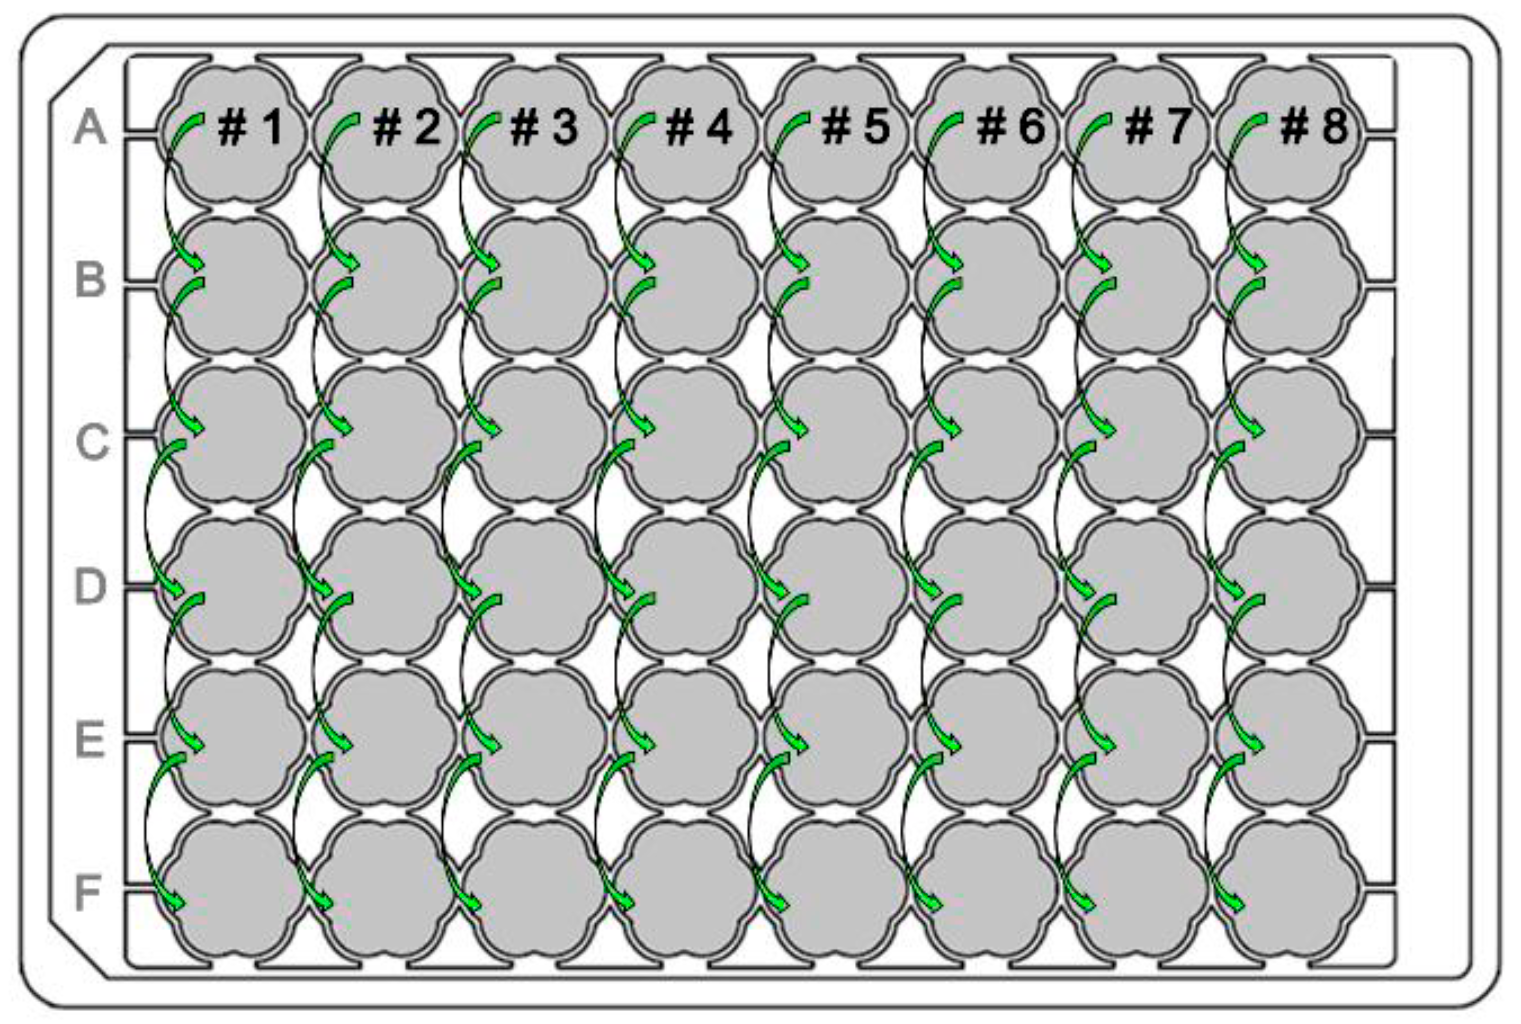
実験レイアウトの構成:MTPのレイアウトをFigure 4に示します。F行のすべてのウェルへの接種が完了するまでピペッティングステップが繰り返されました。
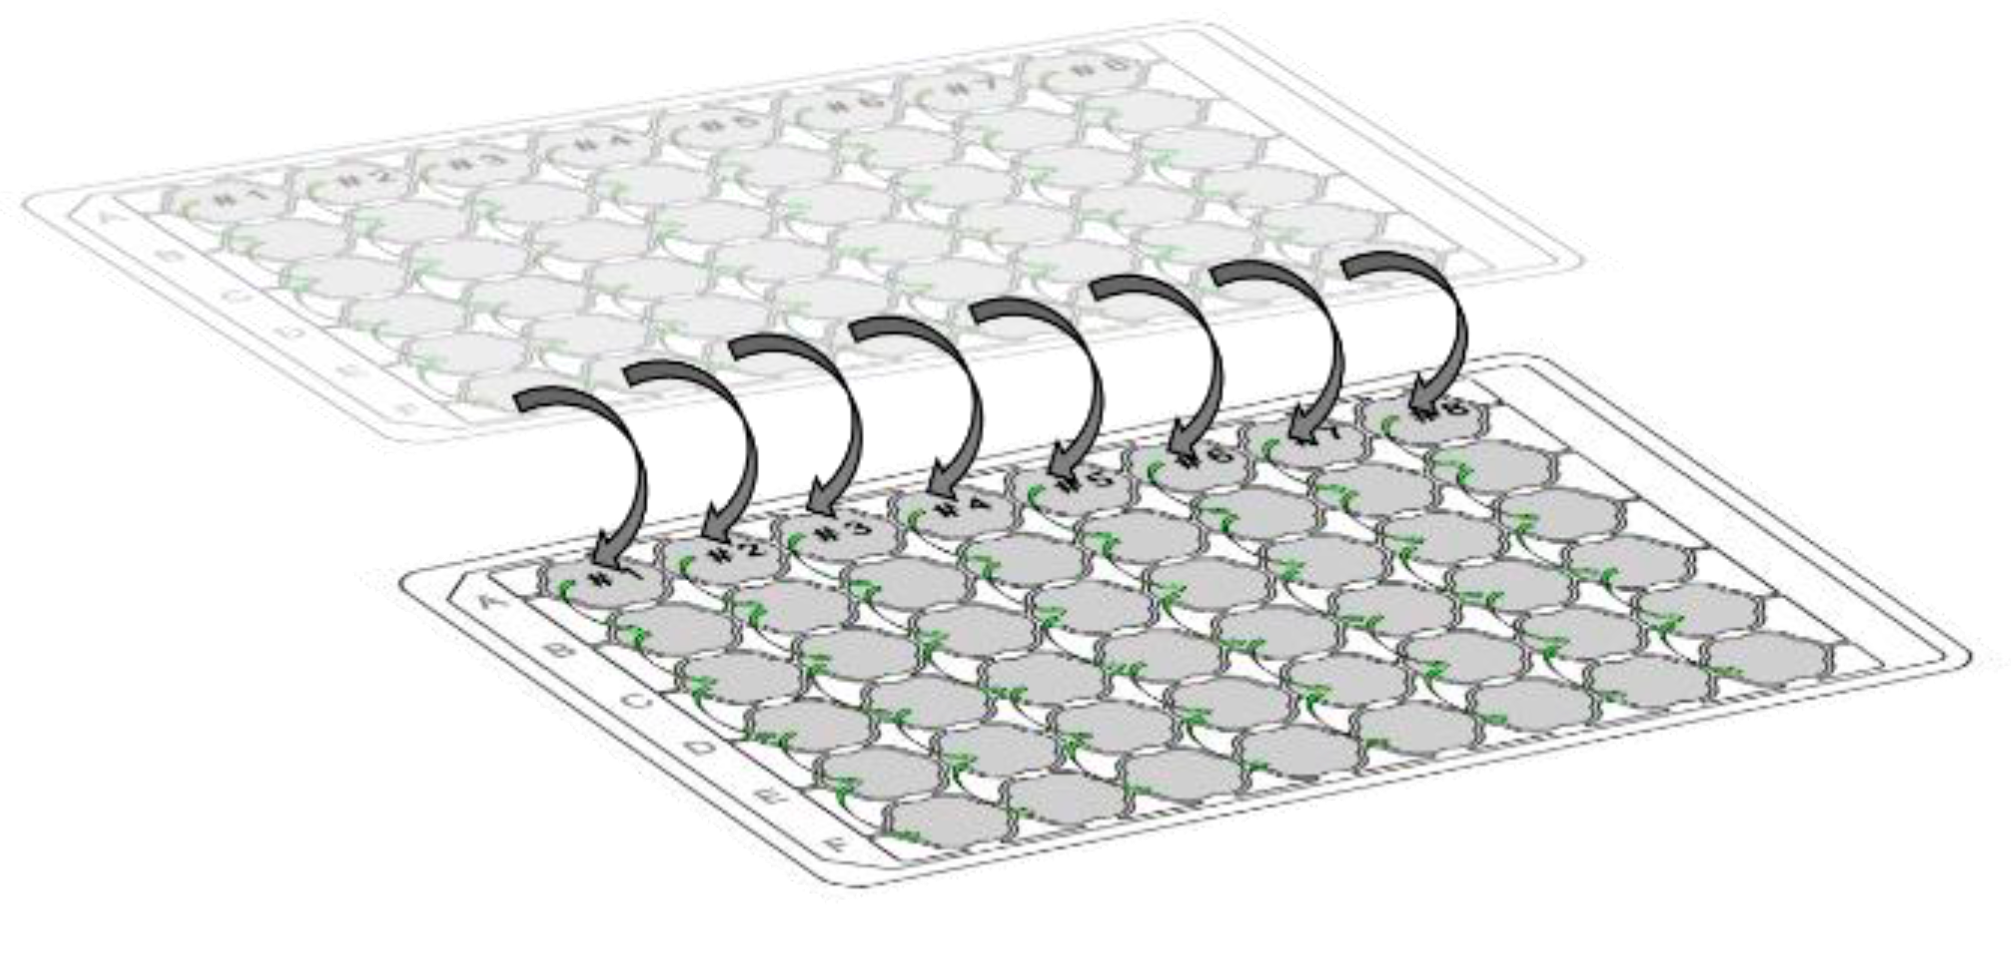
MTPを新しいものに交換し、旧MTPのF行の各ウェルから培養液50 µLを新しいMTPのA行の各ウェルに手動で接種しました。その後、RoboLectorによる自動ALEを、F行への接種が完了するまで継続しました。このプロセスの模式図をFigure 5に示します。
結果
RoboLectorでのピペッティング手順:ピペッティング手順の概要をFigure 6に示します。P. putida のALE実験の一例として、2つのウェルにおけるバイオマスシグナルとウェル内液量の経時変化をプロットしました。
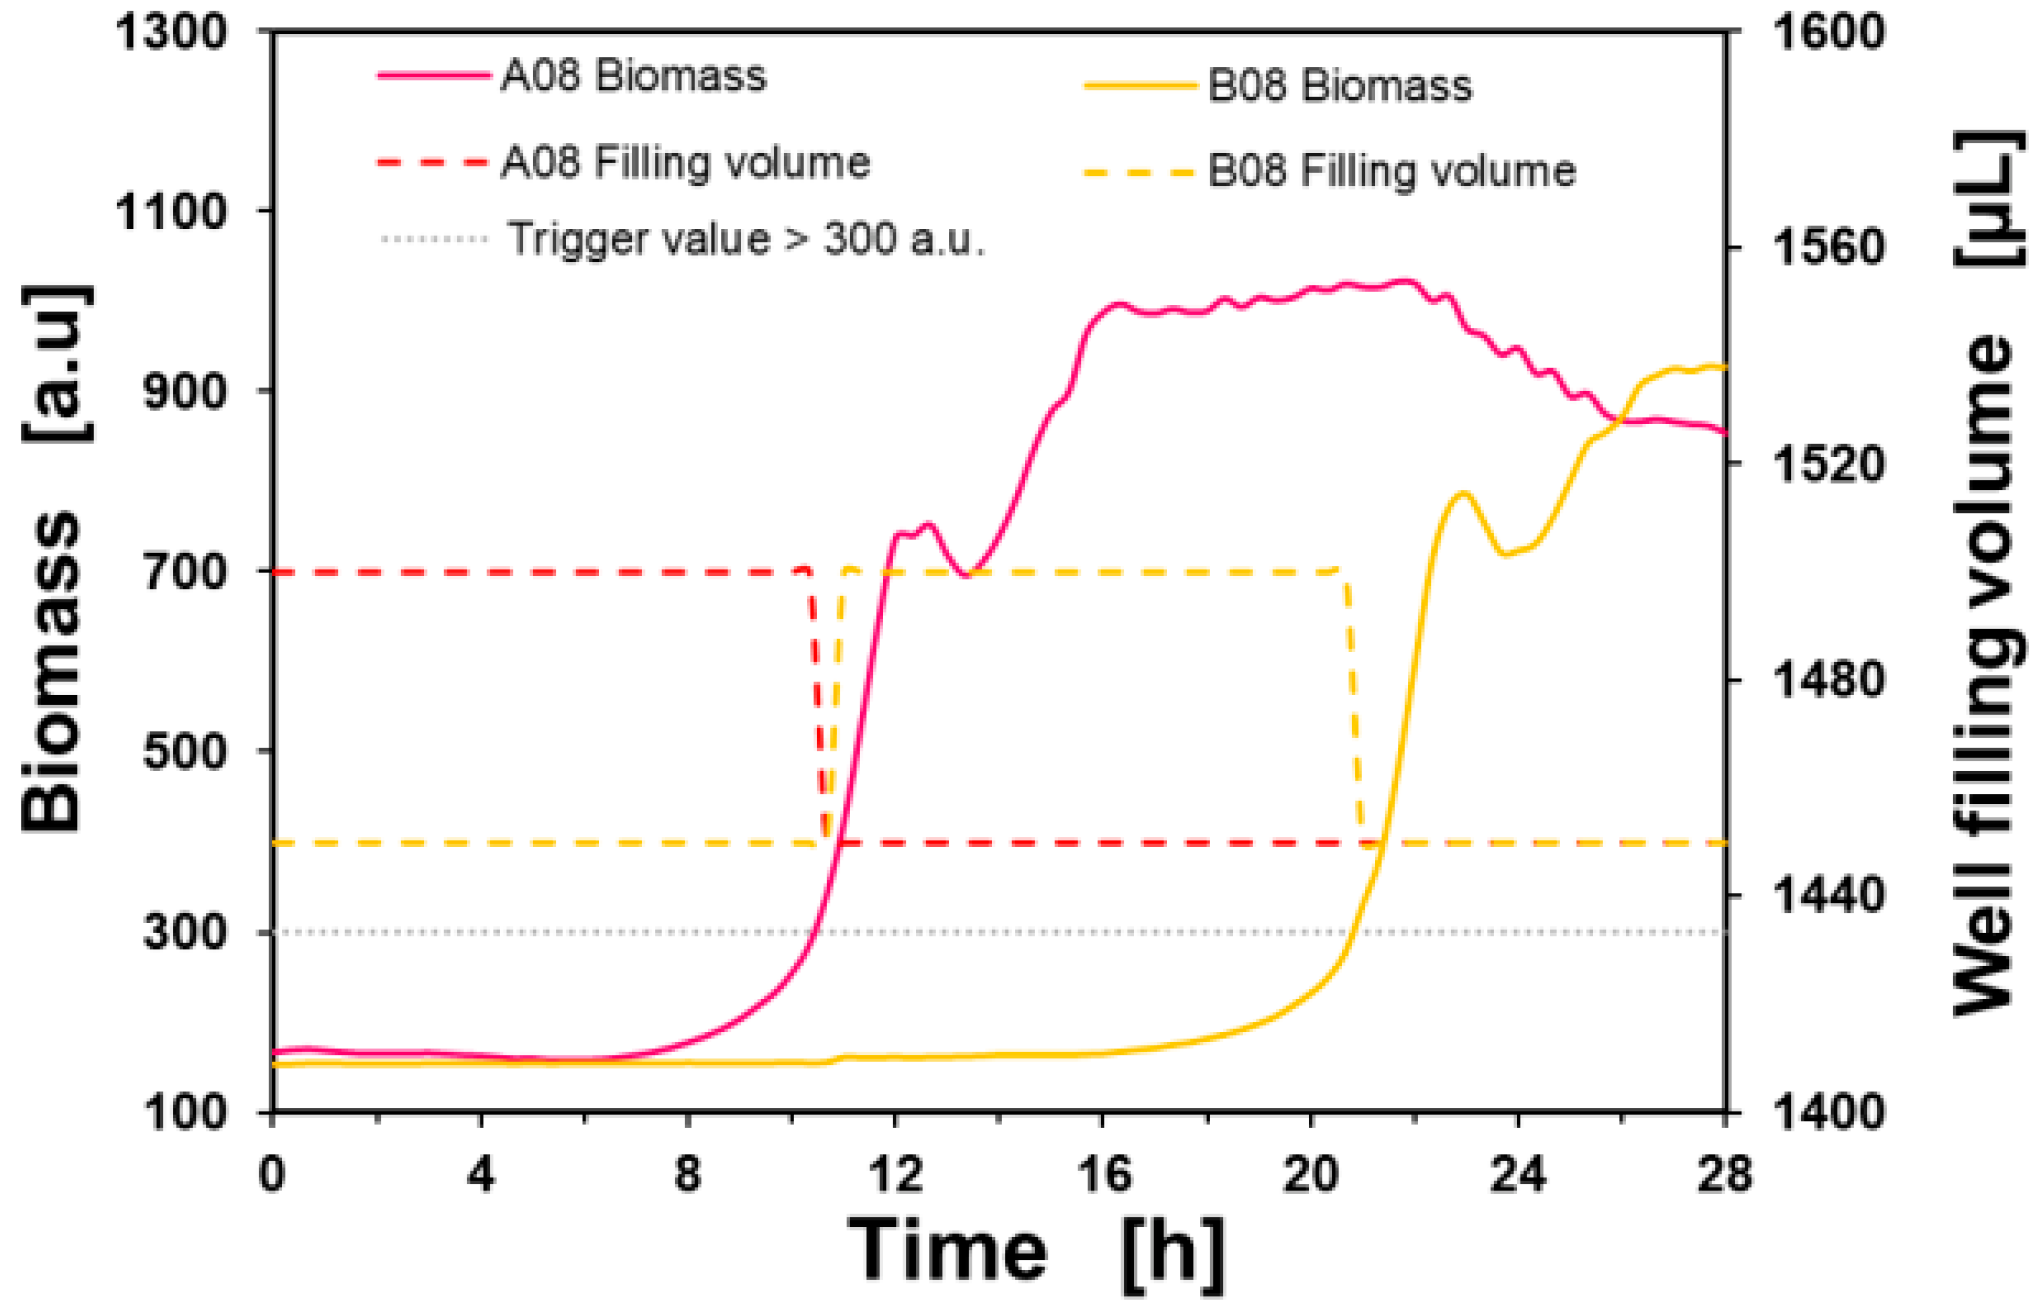
Figure 6. RoboLectorでのピペッティング手順。
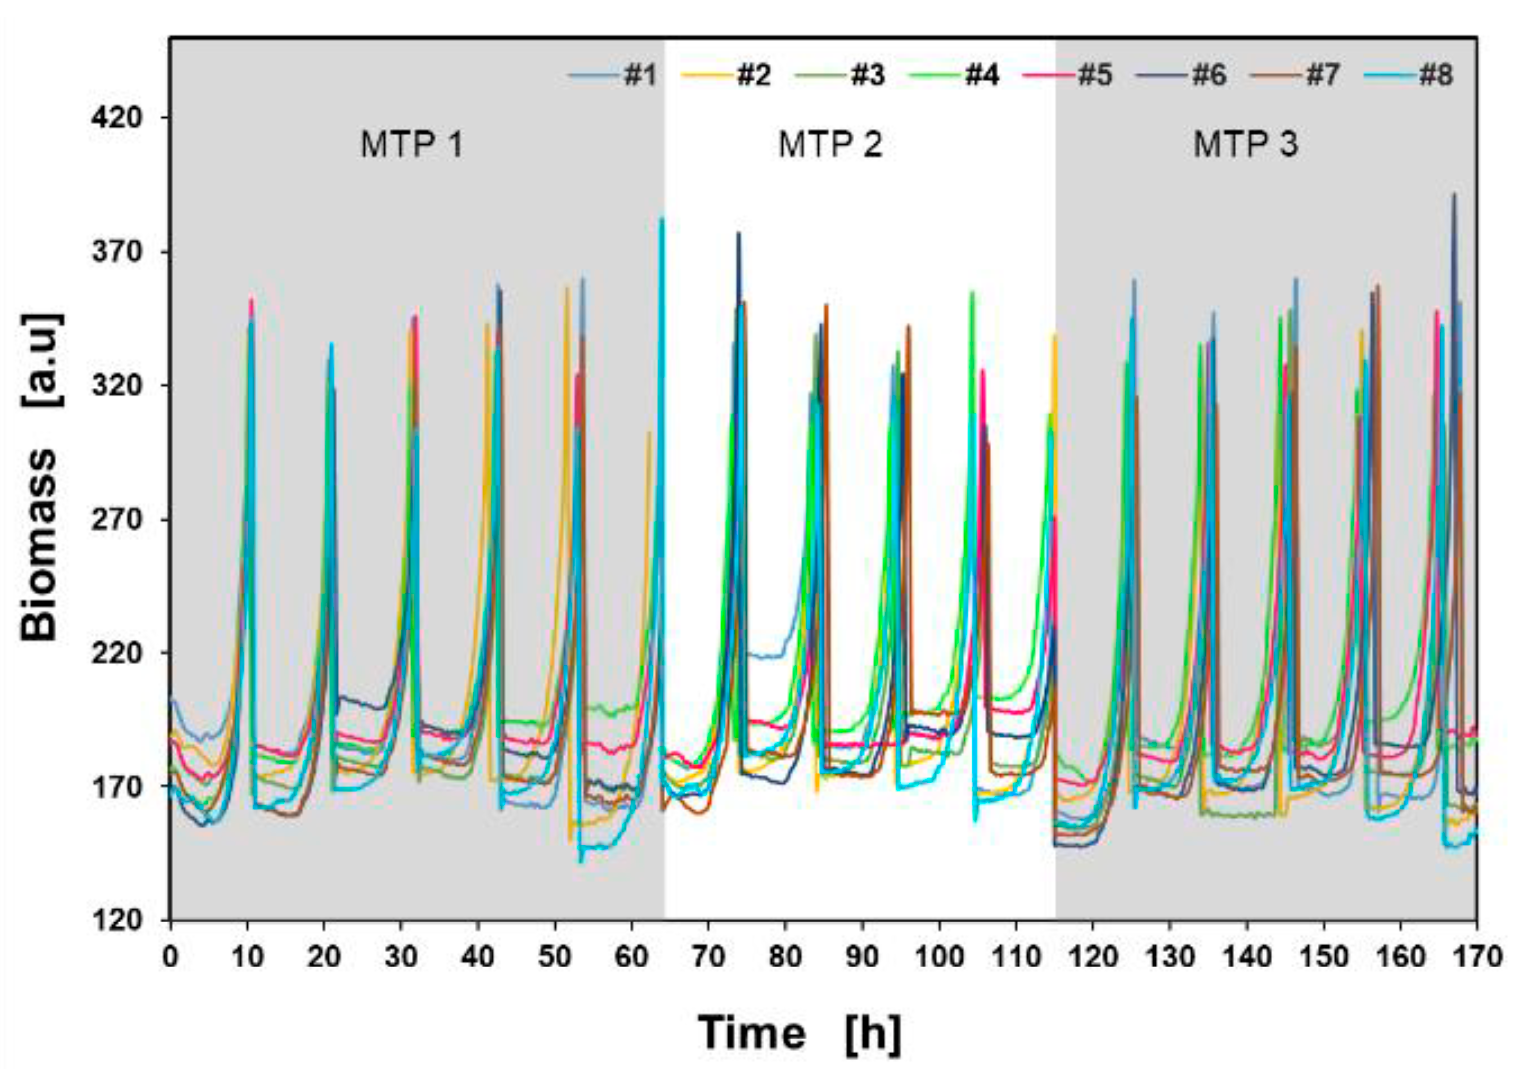
ピペッティング開始条件は、>300a.u.(灰色の点線)としました。トリガー条件が満たされると、RoboLectorは次の測定サイクルで、丸形ウェルプレート上の直下の培養ウェルへ50 µLの培養液を移しました(ウェルA08からB08まで、Figure 6)。各培養系列(#1~#8)について、1枚の丸形ウェルプレート上で最大6回のバッチ培養を行いました。例えばFigure 7に示すように、3枚のマイクロタイタープレートを用いて、8つの培養系列すべてについて合計16回の連続バッチ培養を行いました。
培養系列のスクリーニング: ALE実験全体をFigure 8に示します。
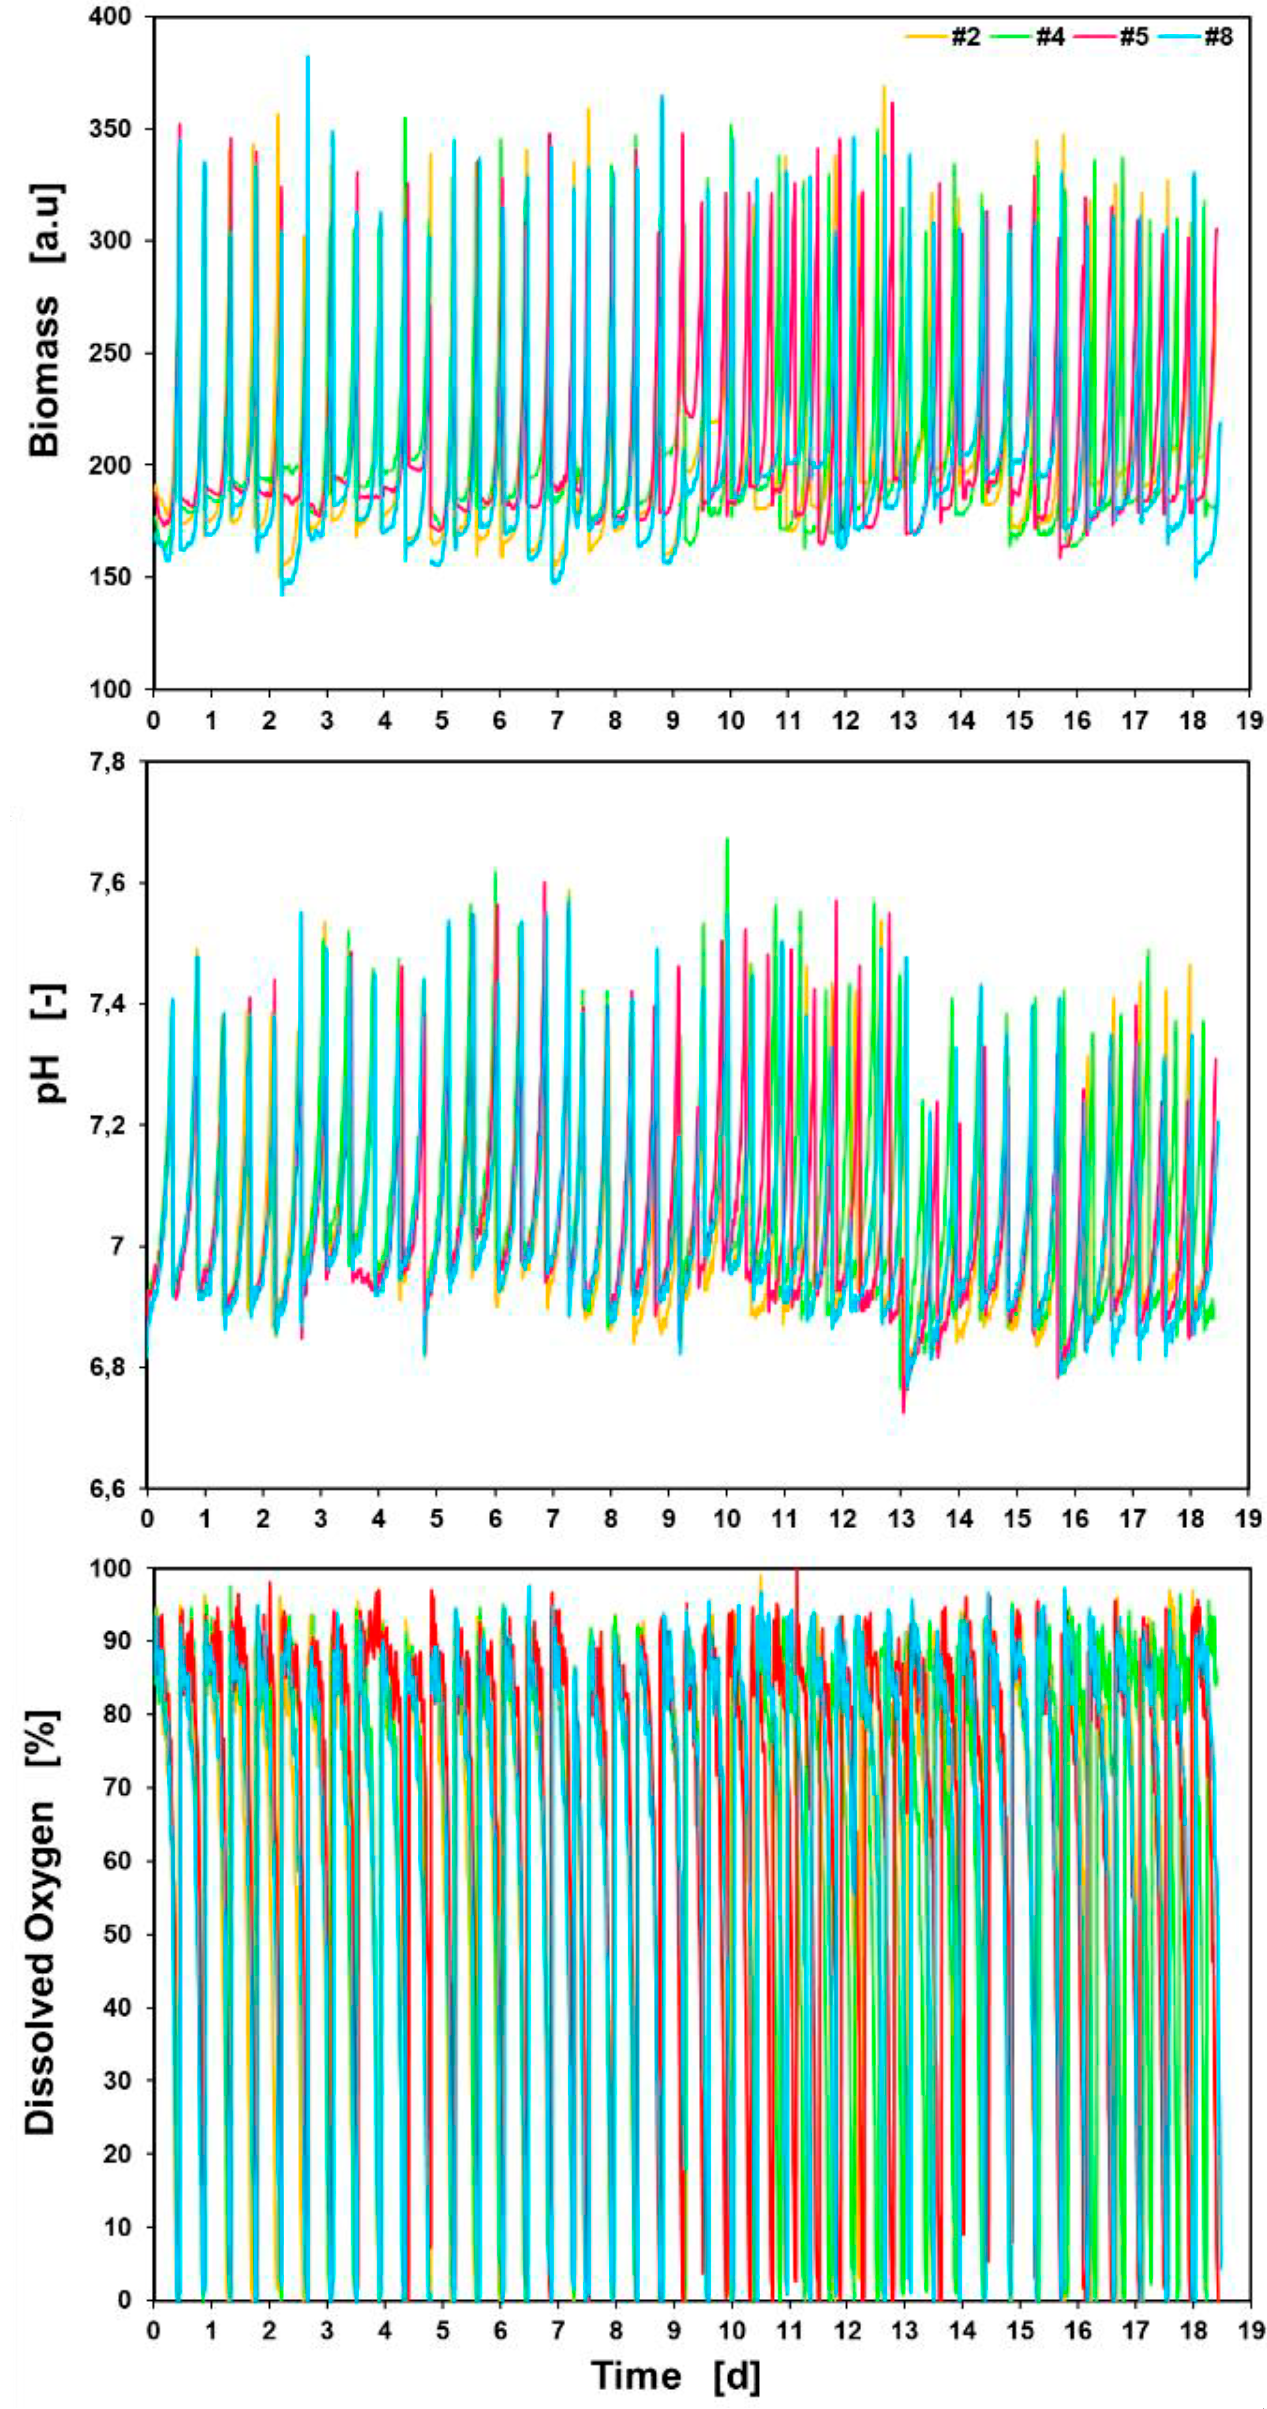
8つの培養系列のうち4つ(#2、#4、#5、#8)の経時的変化がプロットされています。バイオマス、pH、溶存酸素をオンラインで測定しました。また、ALEプロセス全体を通したpHの推移もモニタリングできます。この図では、各バッチ培養中にpH値が上昇していることがわかります。これは、培地中の酢酸が菌の増殖に伴って代謝されるためと考えられます。接種は、各バッチ培養の指数増殖期に行われました。これは、各バッチ培養の指数増殖期にDO値が0%を示していることからも確認できます。
全体として、本研究では、RoboLectorを用いて18.5日間にわたる連続バッチ培養を実施できることを示しました。このことから、RoboLector はALE実験に非常に有効な培養システムであると考えられます。
遅滞期の評価:RoboLectorを用いたALE実験の前後で遅滞期を比較することにより、ALEの効果を検証できます。一例として、P. putida #2株について、増殖挙動における良好な効果を詳しく評価しました。Figure 9に示すように、P. putida KT2440 WT (WT、灰色の線)の増殖挙動を、手動ALE終了後、すなわちRoboLectorを用いたALE開始前(#2 manual ALE、青の線)とRoboLectorを用いたALE終了後(#2 RoboLector ALE、黄緑の線)で比較しました。
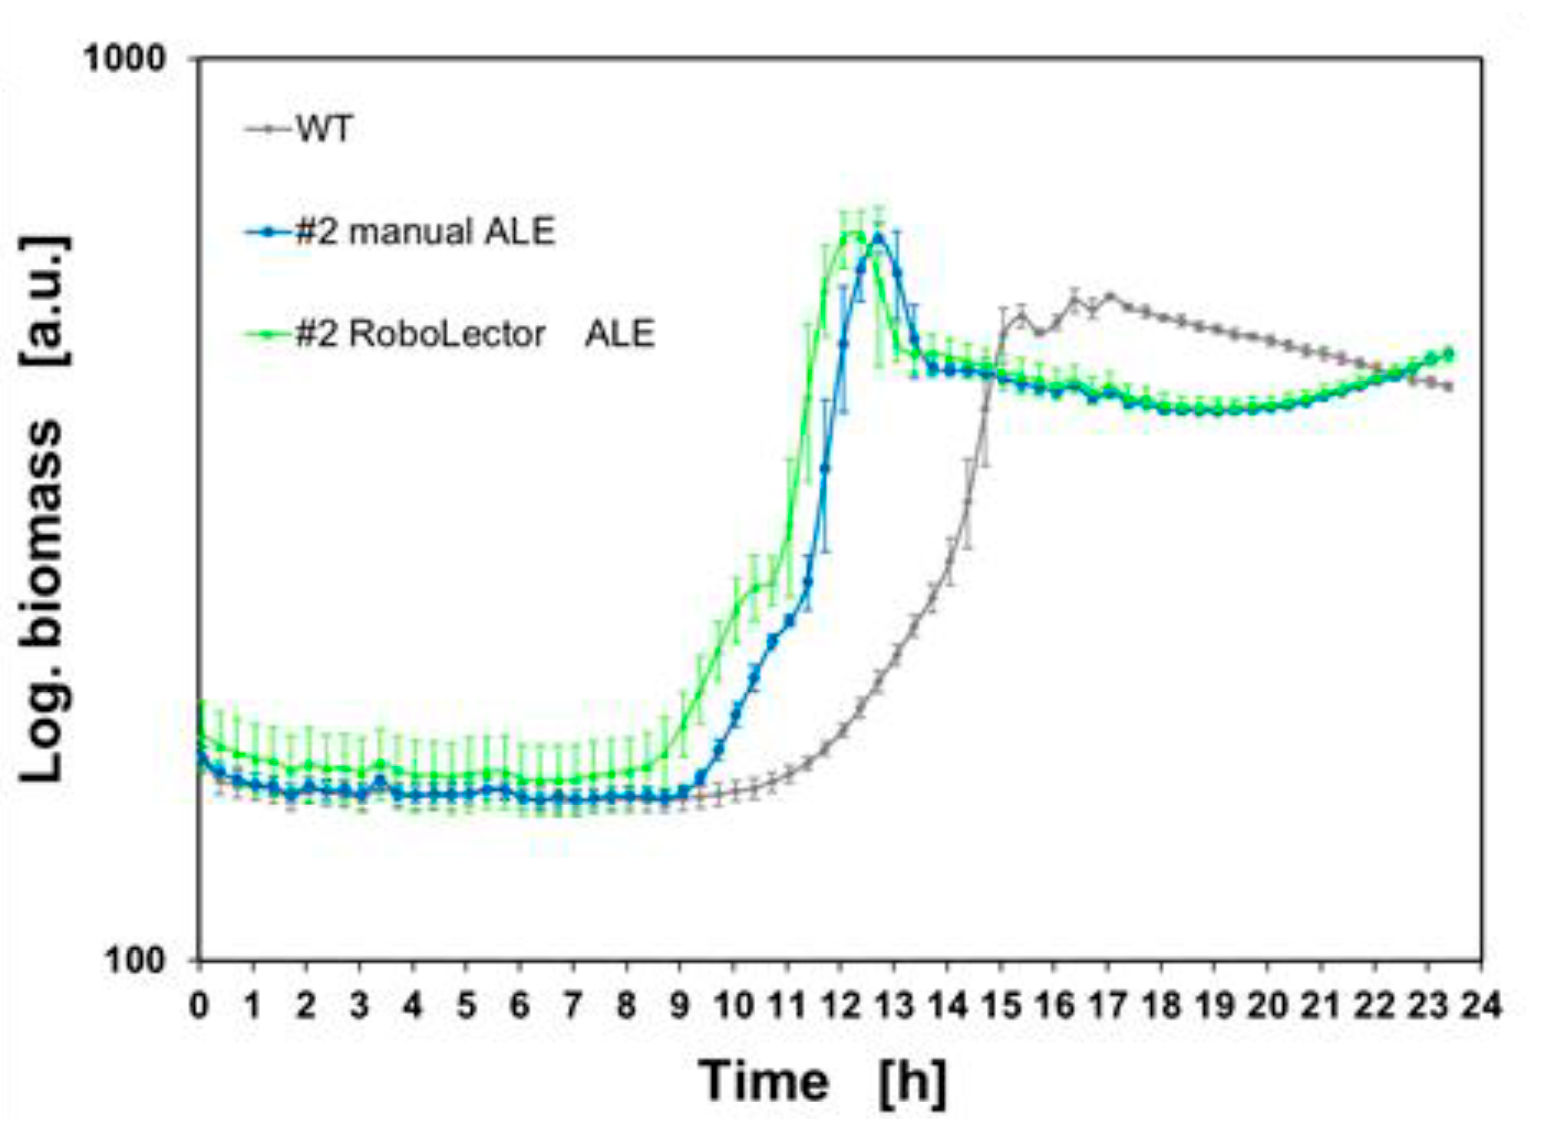
RoboLector‐ALEでは、遅滞時間がさらに短縮されることが示されました。Figure 10は、培養開始後6時間~10時間における各条件の増殖曲線を拡大したものです。
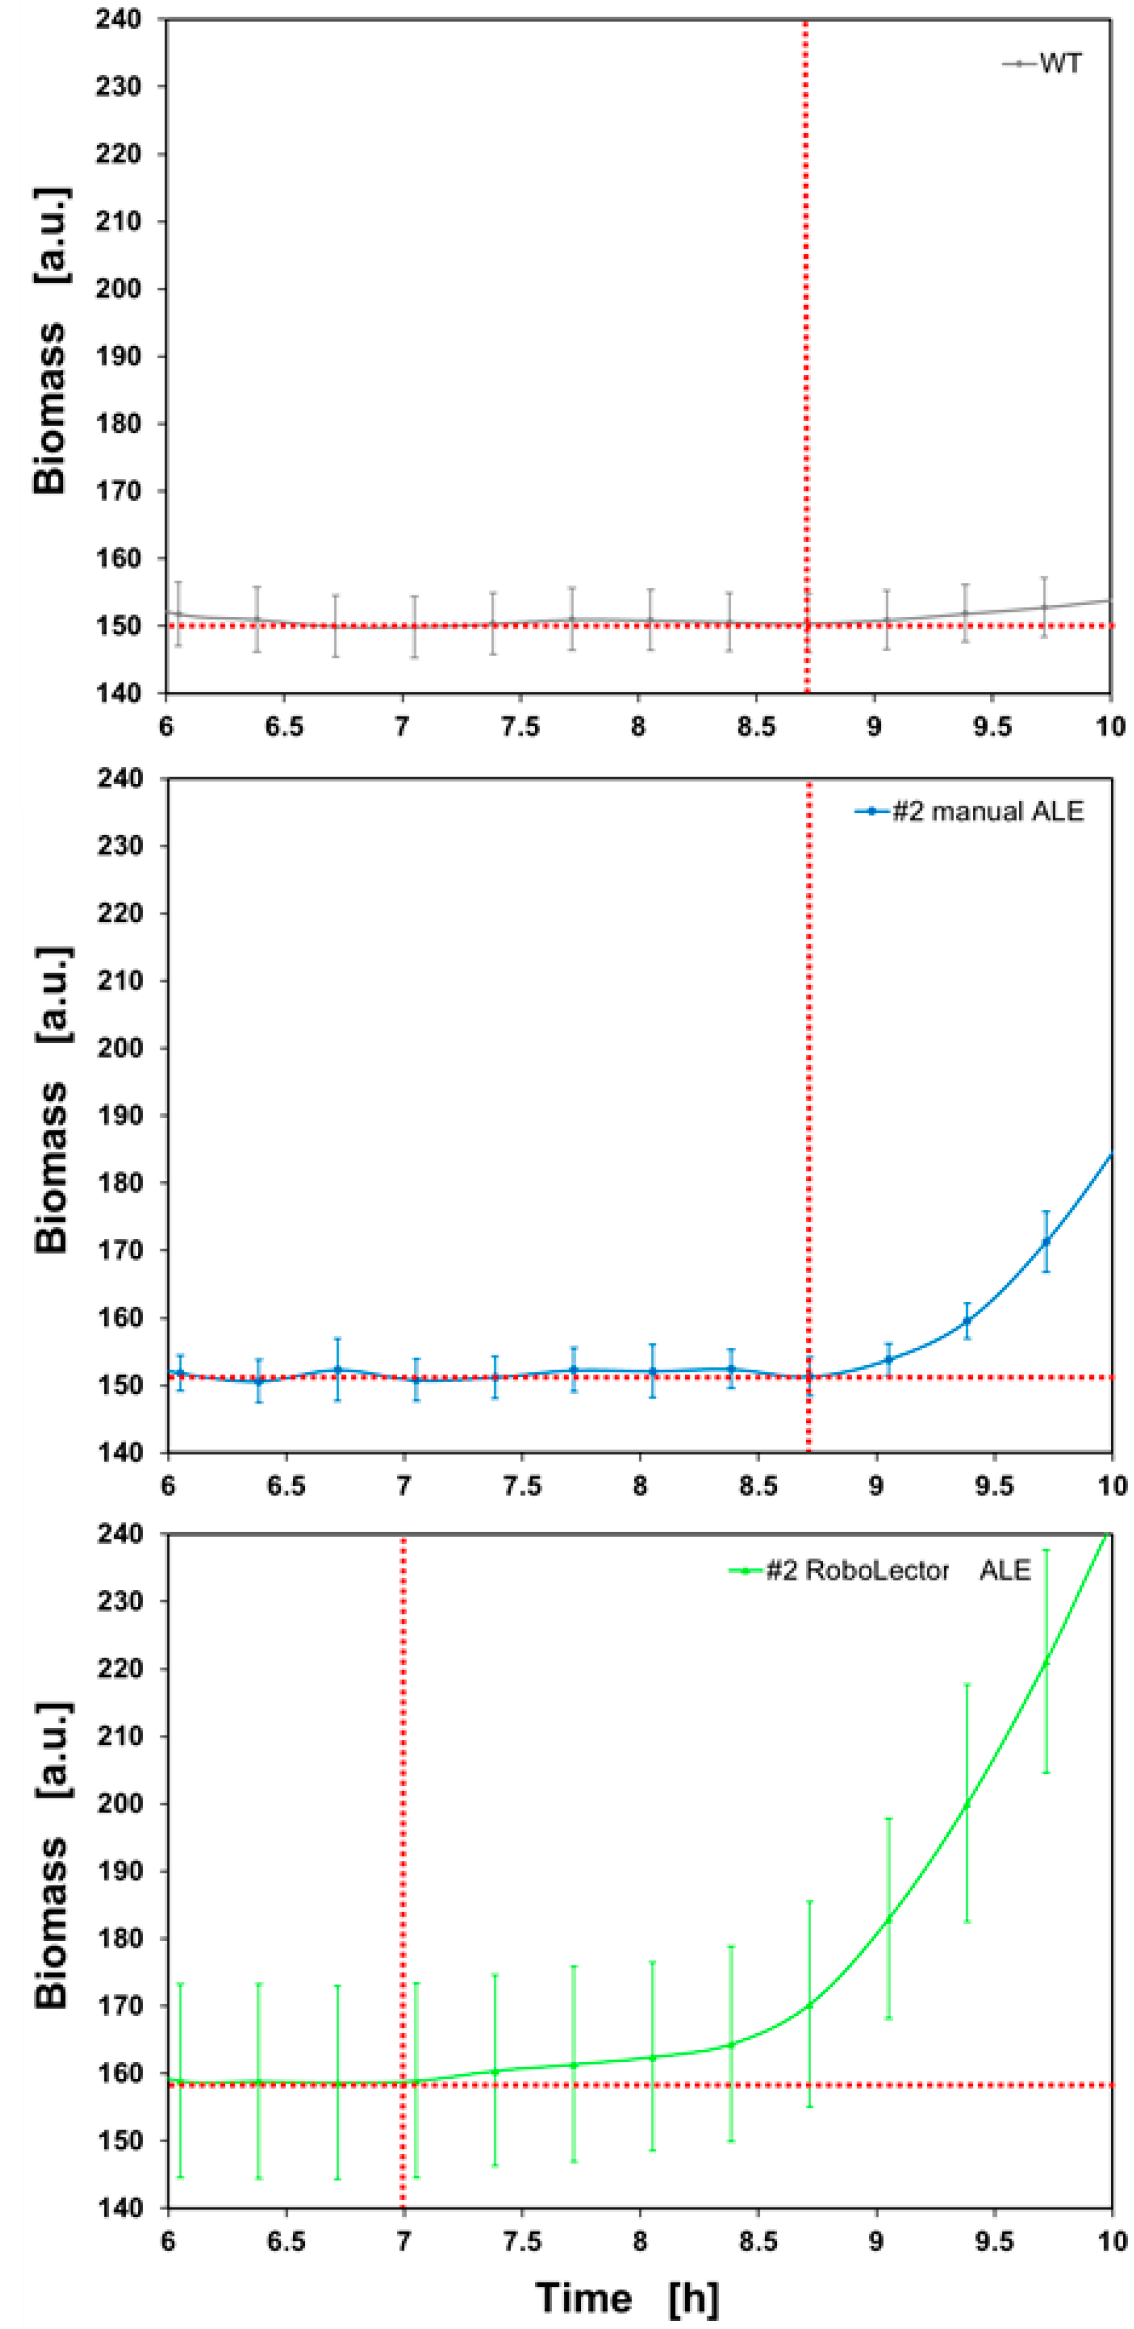
遅滞期は、バイオマス値がベースラインから明確に上昇し始め、着実な増加が認められる時点で終了します。この図から、WTの遅滞時間は手動ALE後の培養系列#2とほぼ同じであることがわかります。両条件とも、培養開始後8.7時間からバイオマス値が着実に増加し始めました。一方、RoboLector-ALE後では遅滞時間が1.7時間短縮され、 培養系列#2のバイオマスシグナルは培養開始後7時間から着実に増加しています。以上の結果は、RoboLectorを用いたALEが成功したことを示しています。
おわりに
本アプリケーションノートでは、RoboLectorを用いたPseudomonas putidaのALE実験が成功したことを示しました。RoboLectorは、手動ピペッティングなどの時間のかかる工程を省略しながら、ハイスループットALEを容易に実施できる培養システムであることを示しました。オンラインでの培養系列のスクリーニングにより遅滞期の短縮を確認し、RoboLectorを用いたALEの有効性を実証しました。
参考文献
[1] Sauer, U. (2001) Evolutionary Engineering of Industrially Important Microbial Phenotypes. In: Nielsen, J. et al. (eds) Metabolic Engineering. Advances in Biochemical Engineering/ Biotechnology, Vol. 73. Springer, Berlin, Heidelberg. https://doi.org/10.1007/3-540-45300-8_7
[2] Radek, A., et al. Miniaturized and automated adaptive laboratory evolution: Evolving Corynebacterium glutamicum towards an improved D-xylose utilization. Bioresour. Technol. (2017), DOI 10.1016/j.biortech.2017.05.055Portnoy,
[3] Vasiliy A., Bezdan, Daniela and Zengler, Karsten. Adaptive laboratory evolution—harnessing the power of biology for metabolic engineering. Current opinion in biotechnology 22.4 (2011): 590-594. DOI 10.1016/j.copbio.2011.03.007
[4] Li WJ, Jayakody LN, Franden MA, Wehrmann M, Daun T, Hauer B, Blank LM, Beckham GT, Klebensberger J, Wierckx N. Laboratory evolution reveals the metabolic and regulatory basis of ethylene glycol metabolism by Pseudomonas putida KT2440. Environ Microbiol. (2019): 3669-3682. doi: 10.1111/1462-2920.14703.
[5] Dragosits, Martin and Mattanovich, Dieter. Adaptive laboratory evolution – principles and applications for biotechnology. Microb Cell Fact 12, 64 (2013). DOI 10.1186/1475-2859-12-64
[6] Troy E. Sandberg, Michael J. Salazar, Liam L. Weng, Bernhard O. Palsson, Adam M. Feist. (2019) The emergence of adaptive laboratory evolution as an efficient tool for biological discovery and industrial biotechnology, Metabolic Engineering, Vol. 56. https://doi.org/10.1016/j.ymben.2019.08.004.
[7] Volke, Daniel Christoph, Patricia Calero, and Pablo Ivan Nikel. "Pseudomonas putida." Trends in Microbiology (2020).
[8] Loeschcke, Anita, and Stephan Thies. "Pseudomonas putida—a versatile host for the production of natural products." Applied microbiology and biotechnology 99.15 (2015): 6197-6214
[9] Poblete‐Castro, Ignacio, et al. "Host organism: Pseudomonas putida." Industrial Biotechnology: Microorganisms 1 (2017): 299-326
[10] Weimer, Anna, et al. "Industrial biotechnology of Pseudomonas putida: advances and prospects." Applied microbiology and biotechnology (2020): 1-22.
[11] Poblete-Castro, Ignacio, et al. "Industrial biotechnology of Pseudomonas putida and related species." Applied microbiology and biotechnology 93.6 (2012): 2279-2290
[12] Novak, Katharina, and Stefan Pflügl. "Towards biobased industry: acetate as a promising feedstock to enhance the potential of microbial cell factories." FEMS microbiology letters 365.20 (2018): fny226.
[13] Li, Yunjie, et al. "Production of succinate from acetate by metabolically engineered Escherichia coli." ACS Synthetic Biology 5.11 (2016): 1299-1307.
[14] Xiao, Yi, et al. "Engineering Escherichia coli to convert acetic acid to free fatty acids." Biochemical engineering journal 76 (2013): 60-69.
[15] Yang, Songyuan, Suhang Li, and Xiaoqiang Jia. "Production of medium chain length polyhydroxyalkanoate from acetate by engineered Pseudomonas putida KT2440." Journal of industrial microbiology & biotechnology 46.6 (2019): 793-800.
[16] Arnold, Stefanie, et al. "Evaluation of small organic acids present in fast pyrolysis bio‐oil from lignocellulose as feedstocks for bacterial bioconversion." GCB Bioenergy 11.10 (2019): 1159-1172.
ベックマン・コールター、そのロゴ、ならびにベックマン・コールター製品名およびサービスマークは、米国およびその他の国におけるBeckman Coulter, Inc.の商標または登録商標です。m2p-labsおよびそのロゴは、米国およびその他の国におけるm2p-labs GmbHの商標および登録商標です。m2p-labsはベックマン・コールター社の子会社です。その他すべての商標は、それぞれの所有者に帰属します。
